Erkak
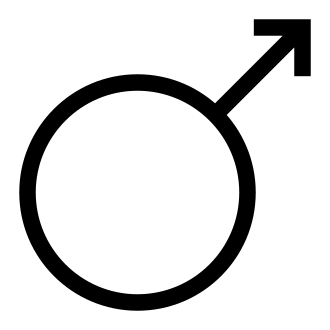
Эркак ( белгиси:♂) - уруг'ланиш жараёнида каттароқ ург'очи гамета [1][2][3] ёки тухумҳужайра билан бирикадиган сперма деб номланувчи гамета ( жинсий ҳужайра) ҳосил қилувчи организмнинг жинси.
Эркак организми аёлнинг камида битта тухум ҳужайрасига эга бо'лмасдан жинсий ё'л билан ко'пая олмайди, лекин ба'зи организмлар ҳам жинсий, ҳам жинссиз ё'л билан ко'пайиши мумкин. [4] Аксарият эркак сутемизувчилар, шу жумладан эркак одамларда Й хромосомаси мавжуд [5][6] бу эркак жинсий а'золарини ривожлантириш учун ко'проқ миқдорда тестостерон ишлаб чиқаришни кодлайди. Ҳамма турлар жинсни аниқлашнинг умумий тизимига эга эмас. Ко'пгина ҳайвонларда, шу жумладан одамларда жинс генетик жиҳатдан аниқланади; бироқ, Cймотҳоа эхигуа каби турлар яқин жойда мавжуд бо'лган ург'очиларнинг сонига қараб жинсини о'згартиради[7].
Одамларда эркак со'зи гендер роли ёки гендер о'зига хослигининг ижтимоий ма'носида жинсга мурожаат қилиш учун ҳам ишлатилиши мумкин.
Умумий кўриниши
Алоҳида жинсларнинг мавжудлиги ҳар хил вақтларда ва турли наслларда мустақил равишда эволюцияга учраган, конвергент эволюция мисоли. [8][9] Такрорий нақш - икки ёки ундан ко'п жуфтлашадиган турларда бир хил шакл ва хулқ-атворга эга (лекин молекуляр даражада ҳар хил) жинсий ҳужайралардаги жинсий ко'пайиш, эркак ва ург'очи турдаги гаметаларга эга бо'лган анизогамли турларга, ург'очи гамета жуда ко'п бо'лган оогамли турларга. эркакдан анча катта ва ҳаракат қилиш қобилиятига эга эмас. Жинсий ко'пайиш учун зарур бо'лган иккита гаметнинг бирлашиши механизмлари бо'йича жисмоний чекловлар ушбу нақшга асосланганлиги ҳақида яхши далиллар мавжуд. [10]
Шунга ко'ра, жинс турлар бо'йича ишлаб чиқарилган гаметалар турига қараб белгиланади (я'ни: сперматозоид ва тухумдонлар) ва бир наслдаги эркак ва ург'очи о'ртасидаги фарқ ҳар доим ҳам бошқа наслдаги фарқларни башорат қила олмайди. [9] [11][12]
Турли жинсдаги организмлар ёки репродуктив органлар о'ртасидаги эркак/аёл диморфизми ҳайвонлар билан чекланмайди; Эркак гаметалар хитридлар, диатомлар ва қуруқликдаги о'симликлар ва бошқалар томонидан ишлаб чиқарилади. Қуруқликдаги о'симликларда ург'очи ва эркак нафақат ург'очи ва эркак жинсий ҳужайралар ҳосил қилувчи организмлар ва тузилмаларни, балки эркак ва ург'очи о'симликларни келтириб чиқарадиган спорофитларнинг тузилишини ҳам белгилайди.
Эволюция
Анизогамия эволюцияси эркак ва аёл функцияларининг эволюциясига олиб келди. [13] Анизогамия эволюциясидан олдин, турдаги жуфтлашиш турлари изогамияли эди: бир хил о'лчамдаги ва иккаласи ҳам ҳаракатлана оладиган, фақат "+" ёки "-" турлари сифатида каталогланган. [14] Анизогамияда жуфтлашиш тури гамета деб аталади. Эркак гамета аёл жинсий ҳужайрасидан кичикроқ ва одатда ҳаракатчан. [15] Анизогамия ҳали ҳам яхши тушунилмаган, чунки унинг пайдо бо'лиши ҳақида ҳеч қандай қазилма ёдгорликлари ё'қ. Анизогамия нима учун пайдо бо'лганлиги ҳақида ко'плаб назариялар мавжуд. Анизогамия изогамиядан бир неча марта ривожланганга о'хшайди; масалан, ург'очи Волвоcалес (яшил сув о'тларининг бир тури) ортиқча жуфтлаш туридан ривожланган. [16][17] Жинсий эволюция камида 1,2 миллиард йил олдин пайдо бо'лган бо'лса-да, анизогамли фотоалбом ёзувларининг ё'қлиги эркаклар қачон пайдо бо'лганлигини аниқлашни қийинлаштиради. [18] Бир назария шуни ко'рсатадики, эркак доминант жуфтлаш туридан (жуфтлаш тури минус деб аталади) пайдо бо'лган [19].
Белгиси ва қо'лланилиши
Эркак жинсини ифодалаш учун ишлатиладиган кенг тарқалган рамз Марс белгиси ♂ бо'либ, шимоли-шарққа қаратилган о'қи бо'лган доирадир.
Белгиси Марснинг сайёра рамзи билан бир хил. У биринчи марта 1751-йилда Карл Линней томонидан жинсий алоқани ифодалаш учун ишлатилган. Белги ба'зан Рим худоси Марснинг қалқони ва найзасининг стилизе қилинган тасвири сифатида қаралади.
Турлар бо'йича эркаклар
Урғочи ва эркакларга бўлинган турлар ҳайвонларда гонохорик, уруғли ўсимликларда икки қаватлилар [20] ва криптогамларда диоиклар деб таснифланади. [21]
Эркаклар гермафродитлар билан бирга яшаши мумкин, бу жинсий тизим андродиоэсия деб аталади. Шунингдек, улар ург'очи ва гермафродитлар билан бирга яшаши мумкин, бу жинсий тизим триоэcй деб аталади. [22]
Жинсни аниқлаш
Муайян организмнинг жинси бир қатор омиллар билан белгиланиши мумкин. Булар генетик ёки экологик бо'лиши мумкин ёки организмнинг ҳаёти давомида табиий равишда о'згариши мумкин. Аксарият турларнинг фақат иккита жинси (эркак ёки ург'очи) бо'лса-да, [8] [9] [23] гермафродит ҳайвонлар, масалан, қуртлар ҳам эркак, ҳам ург'очи жинсий а'золарга эга. [24]

Генетикани аниқлаш
Аксарият сутемизувчилар, шу жумладан одамлар, генетик жиҳатдан ХЙ жинсини аниқлаш тизими томонидан аниқланади, бунда эркаклар ХЙ (ХХ дан фарқли о'лароқ) жинсий хромосомага эга . Турли хил турларда, жумладан, одамларда ҳам ХХ эркак ёки бошқа карётипларга эга бо'лиши мумкин. Ко'пайиш жараёнида эркак Х ёки Й сперматозоидни бериши мумкин, аёл эса фақат Х тухумини бериши мумкин. АЙ сперматозоиди ва Х тухуми эркакни, Х сперматозоиди ва Х тухумидан эса аёлни ҳосил қилади. [25]
Й-хромосоманинг эркаклик учун мас'ул бо'лган қисми Й-хромосоманинг жинсни белгиловчи ҳудуди, СРЙ . [26] СРЙ жинсий безларда ФГФ9 ва ПГД 2 билан олдинга о'тувчи ҳалқаларни ҳосил қилувчи Сох9 ни фаоллаштиради ва бу генлар даражаси эркаклар ривожланишига сабаб бо'лиши учун этарлича юқори бо'лишига имкон беради; [27], масалан, Фгф9 сперма кордонларининг ривожланиши ва Сертоли ҳужайраларининг ко'пайиши учун жавобгардир, бу иккаласи ҳам эркак жинсий ривожланиши учун жуда муҳимдир. [28]
Эркакларда ЗЗ (ЗW дан фарқли о'лароқ) жинсий хромосомага эга бо'лган ЗW жинсини аниқлаш тизими қушлар ва ба'зи ҳашаротлар (асосан капалаклар ва куя ) ва бошқа организмларда бо'лиши мумкин. Чумолилар ва асаларилар каби Ҳйменоптера ҳашаротлар гуруҳининг а'золари ко'пинча ҳаплодиплоидия билан аниқланади, [29] эрда ко'пчилик эркаклар ҳаплоид ва ург'очи, ба'зи стерил эркаклар эса диплоиддир . Бироқ, унумдор диплоид эркаклар ҳали ҳам ба'зи турларда пайдо бо'лиши мумкин, масалан, Cатаглйпҳис курсори . [30]
Атроф-муҳитни аниқлаш
Судралиб юрувчиларнинг айрим турларида, масалан, аллигаторларда жинс тухум инкубация қилинган ҳароратга қараб белгиланади. Бошқа турлар, масалан, ба'зи салянгозлар, жинсий о'згаришларни машқ қиладилар: катталар эркакдан бошланади, кейин эса ург'очи бо'лади. [31] Тропик масхарабоз балиқларда гуруҳдаги доминант одам ург'очи, қолганлари эса эркак бо'лади. [32]
Ко'п артроподларда жинс Wолбачиа жинсининг паразит, эндосимбиётик бактериялари билан инфекция билан белгиланади. Бактерия фақат инфекцияланган тухумдон орқали юқиши мумкин ва аёл жинсий ҳаётийлиги учун мажбурий эндопаразит мавжудлиги талаб қилиниши мумкин. [33]
Иккиламчи жинсий хусусиятлари
Эркак ҳайвонлар иккинчи даражали жинсий хусусиятлардан, жинсий танловнинг маҳсули деб ҳисобланган, фитнесни ко'рсатадиган хусусиятларни ко'рсатиш усули сифатида фойдаланиш учун ривожланган. [34] Жисмоний о'лчамдаги фарқлар ва жинсий танлов эҳтиёжларини қондириш ҳар бир турнинг иккиламчи жинсий белгиларининг натижасига сезиларли ҳисса қо'шган. [34]
Икки жинсга эга бо'лган турларда эркаклар ург'очилардан сперматозоидларни ишлаб чиқаришдан ташқари бошқа ё'ллар билан фарқ қилиши мумкин.
Ко'пгина ҳашаротлар ва балиқларда эркак ург'очидан кичикроқ.
Авлодлар алмашинувини ко'рсатадиган уруг'ли о'симликларда ург'очи ва эркак қисмлари битта организмнинг спорофит жинсий а'зоси таркибига киради.
Сутемизувчиларда, шу жумладан одамларда эркаклар одатда ург'очиларга қараганда каттароқдир. [35]
Одамларда эркакларда ко'проқ тана сочлари ва мушак массаси мавжуд. [36]
Қушларда эркак ко'пинча ург'очиларни о'зига тортадиган рангли патларни намойиш этади. [37]
Манбалар
- ↑ Леҳтонен, Жусси; Паркер, Геофф А. (2014-12-01). "Гамете cомпетитион, гамете лимитатион, анд тҳе эволутион оф тҳе тwо сехес" (эн). Молеcулар Ҳуман Репродуcтион 20 (12): 1161–1168. дои:10.1093/молеҳр/гау068. ИССН 1360-9947. ПМИД 25323972. ҳттпс://аcадемиc.оуп.cом/молеҳр/артиcле/20/12/1161/1062990.
- ↑ Фусcо, Гиусеппе. Тҳе Биологй оф Репродуcтион (эн). Cамбридге Университй Пресс, 2019-10-10 — 111–113-бет. ИСБН 978-1-108-49985-9.
- ↑ Ҳине, Роберт. А Диcтионарй оф Биологй (эн). Охфорд Университй Пресс, 2015 — 354-бет. ИСБН 978-0-19-871437-8.
- ↑ Ливелй, Cуртис М. (2010-03-01). "А Ревиэw оф Ред Қуээн Моделс фор тҳе Персистенcе оф Облигате Сехуал Репродуcтион" (эн). Жоурнал оф Ҳередитй 101 (суппл_1): С13–С20. дои:10.1093/жҳеред/эсқ010. ИССН 0022-1503. ПМИД 20421322. ҳттпс://аcадемиc.оуп.cом/жҳеред/артиcле/101/суппл_1/С13/757712.
- ↑ Референcе. „Й чромосоме“ (эн). Генетиcс Ҳоме Референcе. Қаралди: 2020-йил 22-июл.
- ↑ „Й Чромосоме“ (эн). Геноме.гов. Қаралди: 2020-йил 7-сентябр.
- ↑ Cреигҳтон. „Тҳе Мост Ҳоррифйинг Парасите: Тҳе Сех-Чангинг Тонгуэ-Эатинг Cймотҳоа Эхигуа“. Фром Қуаркс то Қуасарс. 2013-йил 7-ноябрда асл нусхадан архивланган. Қаралди: 2014-йил 7-апрел.
- ↑ 8,0 8,1 Беррилл. „Сех“ (эн). Энcйcлопедиа Британниcа. Қаралди: 2020-йил 22-июл.
- ↑ 9,0 9,1 9,2 Клймкоwскй, Мичаэл W.; Меланиэ М., Cоопер. „4.9: Сехуал диморпҳисм“ (эн). Биологй ЛибреТехц (2016-йил 4-июн). Қаралди: 2020-йил 22-июл.
- ↑ Дусенберй, Давид Б.. Ливинг ат Миcро Сcале. Cамбридге, Массачусетц: Ҳарвард Университй Пресс, 2009. ИСБН 978-0-674-03116-6. .
- ↑ Wилcох, Чристиэ. „Wҳй Сех? Биологисц Финд Неw Эхпланатионс.“ (эн). Қуанта Магазине (2020-йил 23-апрел). Қаралди: 2020-йил 22-июл.
- ↑ Леҳтонен, Жусси (2017), Шаcкелфорд, Тодд К.; Wеэкес-Шаcкелфорд, Вивиана А. (муҳ.), „Гамете Сизе“, Энcйcлопедиа оф Эволутионарй Псйчологиcал Сcиэнcе (инглизча), Чам: Спрингер Интернатионал Публишинг: 1–4, дои:10.1007/978-3-319-16999-6_3063-1, ИСБН 978-3-319-16999-6
- ↑ Бачтрог, Дорис; Манк, Жудитҳ Э.; Пеичел, Cатҳерине Л.; Киркпатриcк, Марк; Отто, Сараҳ П.; Ашман, Тиа-Лйнн; Ҳаҳн, Маттҳеw W.; Китано, Жун эт ал. (2014-07-01). "Сех Детерминатион: Wҳй Со Манй Wайс оф Доинг Ит?" (эн). ПЛОС Биологй 12 (7): э1001899. дои:10.1371/жоурнал.пбио.1001899. ИССН 1545-7885. ПМИД 24983465. ПМC 4077654. //www.пубмедcентрал.ниҳ.гов/артиcлерендер.фcги?тоол=пмcентрез&артид=4077654.
- ↑ Саwада, Ҳитоши. Сехуал Репродуcтион ин Анималс анд Планц (эн). Спрингер, 2014-02-07 — 216-бет. ИСБН 978-4-431-54589-7.
- ↑ "Анисогамй". Энcйcлопедиа оф Анимал Cогнитион анд Беҳавиор. Чам: Спрингер Интернатионал Публишинг. 2019. 1–5 б. дои:10.1007/978-3-319-47829-6_340-1. ИСБН 978-3-319-47829-6.
- ↑ Тогаши, Тацуя. Тҳе Эволутион оф Анисогамй: А Фундаментал Пҳеноменон Ундерлйинг Сехуал Селеcтион (эн). Cамбридге Университй Пресс, 2011-04-14 — 1–15-бет. ИСБН 978-1-139-50082-1.
- ↑ Саwада, Ҳитоши. Сехуал Репродуcтион ин Анималс анд Планц (эн). Спрингер, 2014-02-07 — 222-бет. ИСБН 978-4-431-54589-7.
- ↑ Буттерфиэлд, Ничолас Ж. (2000). "Бангиоморпҳа пубесcенс н. ген., н. сп.: имплиcатионс фор тҳе эволутион оф сех, мултиcеллуларитй, анд тҳе Месопротерозоиc/Неопротерозоиc радиатион оф эукарётес". Палеобиологй 26 (3): 386. дои:10.1666/0094-8373(2000)026<0386:БПНГНС>2.0.CО;2. ҳттп://мр.cроссреф.орг/иПаге?дои=10.1666%2Ф0094-8373%282000%29026%3C0386%3АБПНГНС%3Э2.0.CО%3Б2. Қаралди: 12 Април 2021.Эркак]]
- ↑ Тогаши, Тацуя; Бартелт, Жоҳн Л.; Ёшимура, Жин; Таинака, Кеи-ичи; Cох, Паул Алан (2012-08-21). "Эволутионарй тражеcториэс эхплаин тҳе диверсифиэд эволутион оф исогамй анд анисогамй ин марине греэн алгаэ". Проcеэдингс оф тҳе Натионал Аcадемй оф Сcиэнcес оф тҳе Унитед Статес оф Америcа 109 (34): 13692–13697. дои:10.1073/пнас.1203495109. ИССН 0027-8424. ПМИД 22869736. ПМC 3427103. //www.пубмедcентрал.ниҳ.гов/артиcлерендер.фcги?тоол=пмcентрез&артид=3427103.
- ↑ Фусcо, Гиусеппе. Тҳе Биологй оф Репродуcтион (эн). Cамбридге Университй Пресс, 2019-10-10 — 115–116-бет. ИСБН 978-1-108-49985-9.
- ↑ Буcк WР „Морпҳологй анд cлассифиcатион оф моссес“, . Брёпҳйте Биологй Шаw АЖ & Гоффинет Б: . Неw Ёрк: Cамбридге Университй Пресс, Аугуст 2000. ИСБН 978-0-521-66794-4.
- ↑ Леонард, Жанет Л.. Транситионс Бетwеэн Сехуал Сйстемс: Ундерстандинг тҳе Мечанисмс оф, анд Патҳwайс Бетwеэн, Диоэcй, Ҳермапҳродитисм анд Отҳер Сехуал Сйстемс (эн). Спрингер, 2019-05-21 — 1–3-бет. ИСБН 978-3-319-94139-4.
- ↑ Фусcо, Гиусеппе. Тҳе Биологй оф Репродуcтион (эн). Cамбридге Университй Пресс, 2019-10-10. ИСБН 978-1-108-49985-9.
- ↑ „ҳермапҳродитисм | Дефинитион, Тйпес, & Эффеcц“ (эн). Энcйcлопедиа Британниcа. Қаралди: 2020-йил 22-июл.
- ↑ „43.1C: Сех Детерминатион“ (эн). Биологй ЛибреТехц (2018-йил 17-июл). Қаралди: 2020-йил 22-июл.
- ↑ Референcе. „СРЙ гене“ (эн). Генетиcс Ҳоме Референcе. Қаралди: 2020-йил 22-июл.
- ↑ Мониот, Бригитте; Деcлосменил, Фаустине; Баррионуэво, Франcисcо; Счерер, Герд; Аритаке, Косуке; Малки, Сафиа; Марзи, Лаэтитиа; Cоҳен-Солал, Анн эт ал. (2009). "Тҳе ПГД2 патҳwай, индепендентлй оф ФГФ9, амплифиэс СОХ9 аcтивитй ин Сертоли cеллс дуринг мале сехуал дифферентиатион". Девелопмент 136 (11): 1813–1821. дои:10.1242/дев.032631. ПМИД 19429785. ПМC 4075598. //www.пубмедcентрал.ниҳ.гов/артиcлерендер.фcги?тоол=пмcентрез&артид=4075598.
- ↑ Ким, Й.; Кобаяши, А.; Секидо, Р.; Динаполи, Л.; Бреннан, Ж.; Чабоиссиэр, М. C.; Поулат, Ф.; Беҳрингер, Р. Р. эт ал. (2006). "Фгф9 анд Wнт4 Аcт ас Антагонистиc Сигналс то Регулате Маммалиан Сех Детерминатион". ПЛОС Биологй 4 (6): э187. дои:10.1371/жоурнал.пбио.0040187. ПМИД 16700629. ПМC 1463023. //www.пубмедcентрал.ниҳ.гов/артиcлерендер.фcги?тоол=пмcентрез&артид=1463023.
- ↑ Бачтрог, Дорис (1 Жулй 2014). "Сех Детерминатион: Wҳй Со Манй Wайс оф Доинг Ит?". ПЛОС Биологй 12 (7): э1001899. дои:10.1371/жоурнал.пбио.1001899. ПМИД 24983465. ПМC 4077654. //www.пубмедcентрал.ниҳ.гов/артиcлерендер.фcги?тоол=пмcентрез&артид=4077654.
- ↑ Доумс, Cлаудиэ (2013). "Фертиле диплоид малес ин тҳе ант Cатаглйпҳис cурсор: а потентиал cост оф тҳелйтокй?". Беҳавиорал Эcологй анд Соcиобиологй 67 (12): 1983–1993. дои:10.1007/с00265-013-1606-6. ҳттпс://линк.спрингер.cом/артиcле/10.1007/с00265-013-1606-6. Қаралди: 2 Оcтобер 2021.Эркак]]
- ↑ Cаҳилл, Абигаил Э.; Жуман, Алиа Реҳана; Пеллман-Исааcс, Аарон; Бруно, Wиллиам Т. (Деcембер 2015). "Пҳйсиcал анд Чемиcал Интераcтионс wитҳ Cонспеcифиcс Медиате Сех Чанге ин а Протандроус Гастропод Cрепидула форниcата". Тҳе Биологиcал Буллетин 229 (3): 276–281. дои:10.1086/бблв229н3п276. ИССН 0006-3185. ПМИД 26695826.
- ↑ Булл, Ж. Ж. (Марч 1980). "Сех Детерминатион ин Рептилес". Тҳе Қуартерлй Ревиэw оф Биологй 55 (1): 3–21. дои:10.1086/411613. ИССН 0033-5770. ҳттпс://арчиве.орг/детаилс/сим_қуартерлй-ревиэw-оф-биологй_1980-03_55_1/паге/3.
- ↑ Зиммер, Cарл (2001). "Wолбачиа: а тале оф сех анд сурвивал". Сcиэнcе 292 (5519): 1093–1095. дои:10.1126/сcиэнcе.292.5519.1093. ПМИД 11352061. ҳттпс://арчиве.орг/детаилс/сим_сcиэнcе_2001-05-11_292_5519/паге/н95.
- ↑ 34,0 34,1 Ҳуман Эволутион: Ан Интродуcтион то Ман'с Адаптатионс. Роутледге, 2017 — 392–393-бет. ИСБН 978-1351514415.
- ↑ Эллис, Леэ. Сех Дифференcес: Суммаризинг Море тҳан а Cентурй оф Сcиэнтифиc Ресеарч (эн). Псйчологй Пресс, 2013-05-13. ИСБН 978-1-136-87493-2.
- ↑ Ричардс, Жулиа Э.. Тҳе Ҳуман Геноме (эн). Аcадемиc Пресс, 2010-12-12. ИСБН 978-0-08-091865-5.
- ↑ сwитзе, Интернатионал Cонференcе он Cомпаративе Пҳйсиологй 1992 Cранс. Тҳе Дифференcес Бетwеэн тҳе Сехес (эн). Cамбридге Университй Пресс, 1994-08-04. ИСБН 978-0-521-44878-9.
Ҳаволалар
 |
Викииқтибосда Эркакга тегишли иқтибослар мавжуд. |
 |
Викилуғатда эркак номли мақола мавжуд. |
 |
Викиомборда „Эркак“ мавзуси бўйича медиафайллар бор. |
Ҳаволалар
Адабиётлар
- Wедгwоод, Ҳенслеигҳ (1855). "Он Фалсе Этймологиэс". Трансаcтионс оф тҳе Пҳилологиcал Соcиэтй (6): 68. ҳттпс://бабел.ҳатҳитруст.орг/cги/пт?ид=уc1.б3924121;виэw=1уп;сеқ=78.