Miyacha

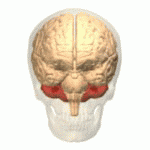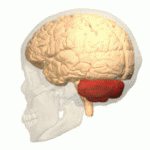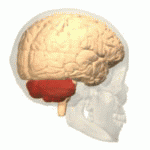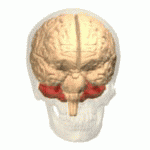
Мияча (лотинча: cеребеллум – кичик мия) умуртқалилар бош миясининг бир қисми. Одатда, мия яримшарларидан кичик, лекин ба’зи балиқларда ундан катта бўлиши ҳам мумкин[1]. Одамларда мияча ҳаракат бошқарилувида катта рол ўйнайди. У, шунингдек, ба’зи бир когнитив функсияларда, масалан диққат ва тил, шунингдек қўрқув ва қониқиш каби ҳиссий бошқарувларда ҳам иштирок этади[2][3], аммо асосий та’сири ҳаракатга боғлиқ функсияларда. Одам миячаси ҳаракатни чақирмайди, лекин ҳаракатдаги координация, тартиб ва аниқ давомийликни та’минлайди: у орқа мия ва миянинг бошқа қисмларидан сезувчи импулсларни қабул қилади ва улар асосида ҳаракатнинг ўта аниқ чиқишини та’минлайди.[4] Миячанинг жароҳатланиши одамларда нозик ҳаракатлар, тана ҳолати бошқарилуви ва янги ҳаракатлар ўрганилиши бузилишига олиб келади.[4]
Анатомик жиҳатдан, одам миячаси бош миянинг пастки қисми тегиб турувчи алоҳида тузилма бўлиб, мия катта яримшарлари пастида ёпишиб туради. Унинг пўстлоғи тартибсиз бурмаларга эга яримшарлар пўстлоғидан фарқ қилиб, параллел эгатлардан иборат. Бу параллел эгатлар мияча пўстлоғи аслида аккордион ҳолатига келтирилган давомли юпқа тўқима эканлигини кўрсатади. Бу юпқа қатламда бир қанча нейрон турлари ўзаро тартиб билан жойлашган. Энг муҳимлари Пуркине ҳужайралари ва донадор ҳужайралардер. Бу комплекс тузилма катта миқдордаги сигналлар билан ишлаш имкониятини беради, лекин мияча пўстлоғидан чиқувчи деярли барча ма’лумот мияча ичидаги оқ моддада жойлашган кичик чуқур ядролар тизими орқали ўтади.[5]
Мияча ҳаркат бошқарувидаги асосий ролидан ташқари, ҳаракатни ўрганишнинг бир қанча турларида муҳим, сезги-ҳаракат (сенсоримотор) муносабатлари ўзгаришларида янги ҳаракат ўрганишдаги иштироки сезиларли. Сезги-ҳаракат калибрациясини миячадаги [синаптик пластиклик]ка боғлиқлигини кўрсатувчи бир қанча назарий моделлар ишлаб чиқилган. Давид Марр ва Жамес Албус томонидан илгари сурилган моделлар ҳар бир мияча Пуркине ҳужайралари умуман фарқли 2 хил сигнални қабул қилишини ўрганиш асосида яратилган: бири донадор ҳужайраларнинг параллел толаларидан келувчи минглаб кучсиз сигналлар; бошқаси ягона кўтарилувчи толадан келувчи жуда кучли сигналларни қабул қилиш[6]. Марр–Албус назариясининг асосий ма’носи кўтарилувчи толалар “ўргатувчи сигнал”ларни ташийди ва параллел толалардаги сигнал кучини узоқ давом этувчи ўзгаришини чақиради. Параллел толалардаги узоқ муддат депрессияларини ўрганиш шу турдаги назарияларни ривожлантирди, лекин уларнинг ишончлилиги бахсли масала[7].
Тузилиши
Умумий анатомияга кўра, мияча зич пўстлоқ, унинг остидаги оқ модда ва асосидаги суюқлик билан тўлган қоринчадан иборат. Тўртта мияча чуқур ядролари оқ модда ичида жойлашган. Пўстлоқнинг ҳар бир қисми юқори геометрик стереотип билан жойлашган кичик нейронал элемент тузилмаларидан иборат. Мияча ва унинг ёрдамчи тузилмалари бир неча юзлаб ёки минглаб мустақил ишловчи, “микрозона” ёки “микроқисмлар” деб аталувчи модулларга бўлиниши мумкин.
Умумий анатомия

Мияча калла суягининг орқа чуқурчаси да жойлашган. Тўртинчи қоринча, мия кўприги ва узунчоқ мия миячанинг олдинги томонида жойлашган.[8] У юқорида ётувчи бош миядан дағал қаттиқ парда билан ажралиб туради; Унинг миянинг бошқа қисмлари билан қолган барча алоқалари кўприк орқали ўтади. Анатомлар миячани метенcепҳалоннинг бир қисми деб таснифлайдилар, унга кўприк ҳам киради; метенcепҳалон ромбенcепҳалоннинг юқори қисми ҳисобланади. Бош мия пўстлоғига ўхшаб, мияча ҳам икки мияча яримшарларига бўлинади; унда яна тор ўрта зона чувалчангсимон қисм (вермис) ҳам бор. Катта бурмалар тизими, келишувга кўра умумий структурани 10 та кичикроқ “бўлакчалар”га бўлади. Ундаги кўплаб митти донадор ҳужайралар ҳисобига мияча миянинг қолган барча қисмлари умумлаштирилганидан кўра кўпроқ нейронлар тутади, лекин у бутун мия ҳажмининг 10% инигина эгаллайди.[9] Миячадаги нейронлар сони неокортексдаги нейронлар сонига боғлиқ. Миячада неокортексдагидан 3,6 марта кўп нейронлар бор ва бу нисбат турли хил сутемизувчиларда бир хиллиги кузатилган.[10]
Миячанинг ноодатий юзаси унинг асосий ҳажми зич тахланган кулранг модда қавати: мияча пўстлоғидан иборатлигини яшириб туради. Бу қаватдаги ҳар бир пушта фолиум деб аталади. Ҳисобланишича, одам миячаси пўстлоғи тўлиқ ёзиб текисланса, 1 метр узунлик ва 5 сантиметр кенгликда, умумий 500 см квадрат майдонни эгаллайди, ҳажмий бирликларга қўйсак 6 см × 5 см × 10 см бўлади.[9] Пўстлоқнинг кулранг моддаси остида оқ модда ётади. У пўстлоққа борувчи ва ундан кетувчи кўплаб миелинланган нерв толаларидан иборат. Оқ модда ичида тўртта мияча чуқур ядролари жойлашган. Улар кўндаланг кесмада дарахт шохларини эслатгани учун арбор витаэ (ҳаёт дарахти) деб аталади.[11]
Мияча нерв системасининг турли қисмлари билан мияча оёқчалари (лот.педунcули cеребелларис) орқали боғланган. Булар юқори (педунcули cеребелларис супериор), ўрта (педунcули cеребелларис медиус) ва пастки (педунcули cеребелларис инфериор) мияча оёқчалари бўлиб, чувалчангсимон қисмга нисбатан жойлашуви бўйича номланган. Юқориги мияча оёқчалари тҳаламус ядролари орқали яримшарлар пўстлоғидаги юқориги мотор нейронларга борувчи эфферент толалар тутади. Толалар мияча чуқур ядроларидан чиқади. Ўрта мияча оёқчалари кўприк билан боғланган ва барча импулсларни кўприкдан, асосан нуcлеус понтинеусдан олади. Яримшарлар пўстлоғидан кўприкка ўтган импулслар ушбу ядро ва унинг толалари орқали миячага ўтказилади. Ўрта оёқча оёқчалар ичида энг йириги бўлиб, миячанинг турли қисмларига борувчи учта тутамларга ажратилади. Пастки мияча оёқчалари вестибуляр ядролар, орқа мия ва кўприк томи (лот. тегментум) дан импулслар қабул қилади. Пастки оёқчадан чиқувчи импулслар эфферент толалар орқали вестибуляр ядролар ва ретикуляр формацияга боради. Бутун мияча бошқарувчи импулсларни пастки мияча оёқчалари орқали пастки олива ядроси (лот. нуcлеус оливарис инфериор)дан олади.[5]
Бўлаклари

Юзасига кўра мияча уч бўлакка бўлиниши мумкин: миячанинг олдинги (лот. лобус cеребелли антериор) (бирламчи эгат устида), орқа (лот. лобус cеребелли постериор) (бирламчи эгат остида) ва бўлакча-тугунча (лот. лобус флоccулонодуларис) бўлакларига. Бу бўлаклар миячани рострал ва каудал (одамларда юқориги ва пастки) қисмларга бўлади. Функсияси жиҳатидан медиалдан-латералга шаклида бўлиш муҳим. Флоccулонодулар бўлакдан ташқари (унинг ўз боғланишлари ва функсиялари бор) миячани функсионал жиҳатдан спиноcеребеллум деб аталувчи медиал сектор ва cереброcеребеллум деб аталувчи латерал секторга бўлиш мумкин.[11] Ўрта чизиқдан чиқиб турувчи узун ва тор бўлак миячанинг чувалчангсимон қисми деб аталади.[11]
Энг кичик соҳа, флоccулонодулар бўлак, одатда вестибулоcеребеллум деб аталади. У эволюцион жиҳатдан энг қари (арчиcеребеллум) қисм ва асосан мувозанат ва макон ориентациясида иштирок этади; унинг асосий алоқалари вестибуляр ядролар билан, шунингдек визуал ва бошқа сезги импулсларини ҳам қабул қилади. Бу соҳанинг зарарланиши қадам ташлаш ва мувозанат бузилишига сабаб бўлади.[11]
Олдинги ва орқа бўлакларнинг медиал зоналари спиноcеребеллум, шунингдек паэоcеребеллум деб ҳам аталади, ташкил қилади. Миячанинг бу сектори тананинг ва қўл-оёқларнинг нозик ҳаракатларида иштирок этади. У орқа миянинг орқа устунларидан спиноcеребеллар траcт билан бирга проприосептив импулсларни ва бош мия нервларидан уч шохли нерв, шунингдек визуал ва эшитиш системаларидан ҳам импулслар қабул қилади.[12] У мияча чуқур ядроларига толалар жўнатади, ўз навбатида, яримшарлар пўстлоғи ва мия устунига проексияланиши орқали тушувчи ҳаракат системалари модуляциясини та’минлайди.[11]
Латерал зона одамларда энг катта қисм бўлиб, cереброcеребеллумни ташкил қилади, шунингдек неоcеребеллум деб ҳам аталади. У яримшарлар пўстлоғидан, хусусан чакка бўлакдан нуcлеус понтинеус орқали (cортиcо-понто-cеребеллар йўлларни ҳосил қилиб) импулсларни қабул қилади ва олдинги латерал таламусга (ўз навбатида яримшарлар пўстлоғининг премотор ва бирламчи ҳаракат соҳасига) ва қизил ядрога импулс юборади.[11] Латерал миячанинг функсияларини та’рифлашда келишмовчиликлар мавжуд: у бажариладиган ҳаракатни режалаштиришда,[13] ҳаракат учун сенсор ахборотларни баҳолашда,[11] ва бир қанча когнитив функсияларда, масалан қайси фе’л ма’лум бир отга энг мос келиши (масалан, "ўтириш" "стул" учун)ни аниқлашда иштирок этади деб ҳисобланади.[14][15][16][17]
Микроанатомия
Миячада икки нейрон тури асосий рол ўйнайди: Пуркине ҳужайралари ва донадор ҳужайралар. Уч турдаги аксонлар ҳам муҳим рол ўйнайди: мохсимон толалар, кўтарилувчи толалар (миячага ташқаридан киради) ва параллел толалар (донадор ҳужайраларнинг аксонлари). Мияча ичида иккита асосий йўл бўлиб, мохсимон ва кўтарилувчи толалардан ҳосил бўлган ва иккови ҳам мияча чуқур ядроларига боради.[9]
Мохсимон толалар тўғридан-тўғри чуқур ядроларга боради, лекин қуйидаги йўналиш орқали ҳам юради: мохсимон толалар → донадор ҳужайралар → параллел толалар → Пуркине ҳужайралари → чуқур ядролар. Кўтарилувчи толалар Пуркине ҳужайраларига боради, шунингдек тўғридан-тўғри чуқур ядроларга ҳам коллатераллар беради.[9] Мохсимон ва кўтарилувчи толалар ҳар бири махсус ахборотларни ташийди; мияча шунингдек дофаминергик, норадренергик, серотонинергик ва холинергик импулсларни ҳам қабул қилади ва глобал модулацияни та’минлайди.[18]
Мияча пўстлоғИ уч қаватга бўлинган. Энг пастда қалин донадор қават, зич жойлашган донадор ҳужайралар, шунингдек интернейронлар, асосан Голжи ҳужайралари шунингдек Лугаро ҳужайралари ва униполяр чўткасимон ҳужайралардан ташкил топган. Ўртада Пуркине қавати ётади. У Пуркине ҳужайралари ва Бергманн глиал ҳужайраларидан иборат ингичка қават. Энг юқорида молекуляр қават ётади ва Пуркине ҳужайраларининг текисланган дендритик дарахтлари, шунингдек Пуркине ҳужайралари дендритик дарахтларига тўғри бурчак остида кирган бир қатор йирик параллел толалардан ташкил топган. Миячанинг бу энг ташқи қаватида шунингдек икки турдаги ингибицияловчи интернейронлар бўлади: юлдузсимон ҳужайралар ва савацимон ҳужайралар. Иккала ҳужайралар ҳам Пуркине ҳужайралар дендритлари билан ГАМКергик синапслар ҳосил қилади.[9]

Андоза:Булл(-): Ингибирловчи бирикиш
Андоза:БуллМФ: мохсимон толалар
Андоза:БуллДCН: Мияча чуқур ядролари
Андоза:БуллИО: Пастки олива ядроси
Андоза:БуллCФ: Кўтарилувчи тола
Андоза:БуллCФC: Кўтарилувчи тола коллатерали
Андоза:БуллГC: Донадор ҳужайралар
Андоза:БуллПФ: Параллел тола
Андоза:БуллПC: Пуркине ҳужайраси
Андоза:БуллГгC: Голжи ҳужайраси
Андоза:БуллСC: Юлдузсимон ҳужайра
Андоза:БуллБC: Савацимон ҳужайра

Пуркине ҳужайралари

Пуркине ҳужайралари миядаги энг фарқланувчи нейронлардан бўлиб, энг эрта аниқланганларидандир – улар биринчи марта чех анатоми Жан Эвангелиста Пуркйнě томонидан 1837-йилда тасвирлаб берилган. Улар ўзларининг дендритиc дарахтлари шаклига кўра аниқланади: дендтритлар жуда кучли тармоқланган, лекин мияча пушталарига нисбатан қат’ий перпендикуляр текисланиб жойлашган. Шундай қилиб Пуркине ҳужайралари дендритлари зич планар тармоқ ҳосил қилади ва улар орасидан параллел толалар тўғри бурчак остида ўтади.[9] Дендритлар дендрит ўсиқчалари билан қопланган ва уларнинг ҳар бири параллел толалардан синаптик импулс қабул қилади. Пуркине ҳужайралари миядаги бошқа ҳар қандай турдаги ҳужайрадан кўра кўпроқ синаптик богланишга эга – одамнинг битта Пуркине ҳужайрасида тахминан 200 000 атрофида ўсиқчалар бўлади.[9] Пуркине ҳужайраларининг катта, сферик таналари мияча пўстлоғидаги бир ҳужайра қалинлигидаги тор қаватга жойлаштирилган ва “Пуркине қавати” деб аталади. Уларнинг аксонлари пўстлоқнинг яқин соҳаларига коллатераллар бергач, мияча чуқур ядроларига боради ва бу ерда бир қанча турдаги ядро ҳужайралари билан 1000 атрофида боғланишлар (ҳаммаси билан кичик доменларда) ҳосил қилади. Пуркине ҳужайралари нейромедиатор сифатида ГАМКни ишлатади ва шунинг учун нишонларига ингибирловчи та’сир кўрсатади.[9]
Пуркине ҳужайралари мияча йўлларининг юрагини ташкил қилади. Улар ўлчамининг катталиги ва ўзига хос фаолияти туфайли ҳайвонларда экстраселлуляр ёзиб олиб усуллари билан ўрганишда қулайликлар яратади. Пуркине ҳужайралари нормада ҳеч қандай синаптик импулс келмаса ҳам катта частотада ҳаракат потенсиаллари тарқатиб туради. Уйғоқ ҳайвонларда тахминан 40 Ҳз атрофида. Ҳаракат потенсиалларининг чизмалари оддий ва мураккаб спайк (ингл. спике)лар аралашмасидан иборатлигини кўрсатади. Оддий спайк битта ҳаракат потенсиали ва ундан кейин келган тахминан 10 мс давом этувчи рефракторлик давридан иборат; мураккаб спайк жуда қисқа спайклараро интерваллар ва пасайиб борувчи амплитудали ҳаракат потенсиалларининг бир хил занжиридан иборат.[20] Физиологик ўрганишлар шуни кўрсатадики, мураккаб спайклар (базал (инг. баселине) частоталари 1 Ҳз атрофида ва ҳеч қачон 10 Ҳздан ошмайди) кўтарилувчи толалар активлашишига боғлиқ. Оддий спайклар бўлса базал активлик ва параллел толлалардан келувчи импулслар комбинациясидан ҳосил бўлади. Мураккаб спайклар одатда оддий спаклар фаолияти сусайган бир неча юз миллисекундларда келади.[21]
Пуркине нейронларининг махсус, ўзига хос хусусияти калбиндин экспрессиясидир.[22] бир томонлама ўтирғич нервининг сурункали жароҳати бўлган каламуш миясини калбиндинли бўяш шуни кўратдики, вояга етган мияда Пуркине ҳужайралари янгидан ҳосил бўлиши ва миячада янги бўлакчалар ҳосил бўлишига олиб келиши мумкин.[23]

Донадор ҳужайралар

Мияча донадор ҳужайралари, Пуркине ҳужайраларидан фарқли миядаги энг кичик нейронларга киради. Улар шунингдек миядаги энг сони кўп нейронлардир: одамларда умумий сони тахминан 50 млрд, бу миядаги нейронларнинг ¾ қисми мияча донадор ҳужайралари дегани.[9] Уларнинг ҳужайра таналари мияча пўстлоғи пастки қисмидаги қалин қаватда жойлашган. Донадор ҳужайра тўрт ёки бештагина дендритга эга, уларнинг ҳар бири “дендрит чангали” деб аталувчи кенгаймада тугайди.[9] Бу кенгаймалар мохсимон толалардан келувчи қўзғатувчи импулслар ва Голжи ҳужайраларидан келувчи ингибирловчи импулсларни қабул қилади.[9]
Донадор ҳужайралнинг нозик, миелинланмаган аксонлари пўстлоқнинг юқори (молекуляр) қаватига вертиcал кўтарилади, шу ерда иккига бўлинади ва ҳар бири горизонтал йўналиб параллел толани ҳосил қилади; вертикал шохнинг икки горизонтал тармоққа бўлиниши ажралиб турувчи “Т” шаклини беради. Одам параллел толаси бўлинишдан кейин ҳар бир томонга ўртача 3 мм, умумий 6 мм (пўстлоқ қаватнинг 1/10 қисми) тарқалади.[9] Параллел толалар ўз йўлида Пуркине ҳужайраларининг дендрит дарахтларини кесиб ўтади ва ҳар 3-5 тадан биттаси билан боғланиб, Пуркине ҳужайралари денрит ўсиқчалари билан умумий 80-100 та синаптик боғланишлар ҳосил қилади.[9] Донадор ҳужайралар нейромедиатор сифатида глутамат кислотасини ишлатади ва шунинг учун нишонларига қўзғатувчи та’сир қилади.[9]
Донадор ҳужайралар импулсни мохсимон толалардан қабул қилади, лекин сон жиҳатдан улардан анча кўп: 200 тага 1 та (одамларда). Шундай қилиб донадор ҳужайралар популяцияси фаоллик ҳолати мохсимон толалардаги ахборот билан бир хил, лекин анчагина қиммат усулда кўчирилади. Донадор ҳужайралар жуда кичик ва зич жойлашгани учун уларнинг спайк фаоллигини тажривадаги ҳайвонларда ёзиб олиш қийин, шунинг учун назарияларга асос сифатида фойдаланиш учун ма’лумотлар кам. Уларнинг функсияси бўйича энг машҳур ғоя 1969-йили Давид Марр томонидан илгари сурилган: улар мохсимон толалардан келган импулслар комбинацияларини шифрлайдилар. Бу, ҳар бир донадор ҳужайра 4-5 тагина мохсимон толадан импулс олади ва фақатгина биитасидан импулс келганида жавоб бермайди, балки биттадан кўпидан келганда жавоб беради, деган фикрга асосланган. Комбинацияланган шифрлаш схемаси миячага, унга келадиган импулсларни фақатгина мохсимон толалар олиб келадиганга нисбатан нозикроқ фарқлаш имконини беради.[24]
Мохсимон толалар
Мохсимон толалар донадор қаватга уларнинг ҳосил бўлиш нуқталаридан киради, кўпчилиги нуcлеус понтинеусдан кўтарилади, қолган қисми орқа мия, вестибуляр ядролар ва бошқалардан келади. Одам миячасида мохсимон толаларнинг умумий сони тахминан 200 миллионта.[9] Бу толалар донадор ҳужайралар ва миячанинг чуқур ядролари билан қўзғатувчи синапслар ҳосил қилади. Донадор қават ичида мохсимон толалар “розеткалар” деб аталувчи кенгаймалар ҳосил қилади. Мохсимон толалар ва донадор ҳужайра дендритлари орасидаги контакт гломерула деб аталувчи структуралар ичида кечади. Ҳар бир гломерулада марказдаги мохсимон тола розеткаси ва унга боғланган 20 тагача донадор ҳужайра дендрит чангаллари бор. Голжи ҳужайралари терминаллари структурани инфилтратлайди ва донадор ҳужайра дендритларида ингибирловчи синапслар ҳосил қилади. Бутун ассемблея глиал ҳужайралар ғилофи билан ўралган.[9] Ҳар бир мохсимон тола бир қанча мияча фолийларига коллатерал тармоқлар беради ва умумий 20-30 та розеткалар ҳосил қилади; шундай қилиб битта мохсимон тола тахминан 400-600 та донадор ҳужайралар билан контакт ҳосил қилади.[9]
Кўтарилувчи толалар
Пуркине ҳужайралари мия устунининг контралатерал қисмидаги пастки олива ядросидан ҳам кўтарилувчи толалар орқали импулс қабул қилади. Пастки олива узунчоқ мияда жойлашган ва орқа мия, мия устуни ва яримшарлар пўстлоғидан импулс қабул қилиб тўғри миячага жўнатади. Кўтарилувчи тола мияча пўстлоғига киришдан олдин мияча чуқур ядроларига коллатераллар беради. Мияча пўстлоғида ҳар бири 10 та терминал тармоқларга бўлинади ва уларнинг ҳар бири алоҳида Пуркине толасига боғланади.[9] Таққослаш учун, ҳар бир Пуркине ҳужайраси 100 000дан ортиқ параллел толалардан ва бир дона кўтарилувчи толадан импулс қабул қилади; лекин шу бир дона тола Пуркине ҳужайраларининг дендритларига “кўтарилиб” уларнинг атрофида ўралади ва 300 тагача синапслар ҳосил қилади.[9] Бу тармоқ шу қадар кучлики, кўтарилувчи толадаги биргина ҳаракат потенсиали Пуркине ҳужайрасида мураккаб спайк ҳосил бўлишига олиб келади: тўсатдан бир қанча спайклар қатори ҳосил бўлади. Улар амплитудаси пасайиб боради ва улардан кейин фаоллик тўхтаган пауза келади. Кўтарилувчи тола синапслари ҳужайра танаси ва проксимал дендритларни қоплаб олади; бу зонадан параллел тола импулслари кирмайди.[9]
Кўтарилувчи толалар кам қўзғалади, лекин биргина кўтарилувчи тола ҳаракат потесиали нишон Пуркине ҳужайрасида тўсатдан кўплаб ҳаракат потенсиаллари чақиради (мураккаб спайк. Пуркине ҳужайрасига келувчи параллел ва кўтарилувчи толалар фарқи (100 000 дан ортиқ ва бир дона) мияча анатомиясининг энг ўзига хос хусусияти бўлиб, кўплаб назарияларга сабабчи бўлган. Кўтарилувчи толалар функсияси миячага алоқадор энг бахсли мавзудир. Ҳозирги кунда буни тушунтирувчи иккита мактаб бор: Марр ва Албус мактаби ғояси, кўтарилувчи тола тўғридан-тўғри ўргатувчи сигналлар ташийди; бошқа ғоя, миячадан чиқувчи импулсларни бевосита бир шаклга келтириш. Иккала қараш ҳам катта миқдордаги мақолалар билан ҳимоя қилинган. Ин тҳе wордс оф оне ревиэw, "Ин трйинг то сйнтҳесизе тҳе вариоус ҳйпотҳесес он тҳе фунcтион оф тҳе cлимбинг фиберс, оне ҳас тҳе сенсе оф лоокинг ат а драwинг бй Эсчер. Эач поинт оф виэw сеэмс то аccоунт фор а cертаин cоллеcтион оф финдингс, бут wҳен оне аттемпц то пут тҳе дифферент виэwс тогетҳер, а cоҳерент пиcтуре оф wҳат тҳе cлимбинг фиберс аре доинг доэс нот аппеар. Фор тҳе мажоритй оф ресеарчерс, тҳе cлимбинг фиберс сигнал эррорс ин мотор перформанcе, эитҳер ин тҳе усуал маннер оф дисчарге фреқуэнcй модулатион ор ас а сингле анноунcемент оф ан 'унехпеcтед эвент'. Фор отҳер инвестигаторс, тҳе мессаге лиэс ин тҳе дегреэ оф энсембле сйнчронй анд рҳйтҳмиcитй амонг а популатион оф cлимбинг фиберс."[21]
Чуқур ядролар

Мияча чуқур ядролари мияча ўзагидаги оқ модда ичида ётувчи кулранг модда тўпламлари. Улар вестибуляр ядроларни ҳисобга олмаганда, миячадан чиқувчи импулслар асосини ташкил қилади. Бу ядролар мохсимон ва кўтарилувчи толалардан коллатераллар, шунингдек мияҳа пўстлоғидаги Пуркине ҳужайраларидан ингибирловчи импулслани қабул қилади. Тўрт ядро (тишсимон, шарсимон, пробкасимон ва чўққи), ҳар бири бош мия ва мияча пўстлоғининг турли қисмлари билан боғланади. (Шарсимон ва пробкасимон ядролар биргаликда аралашган ядро (инг. интерпосед нуcлеус) деб ҳам аталади). Чўққи ва аралашган ядролар спиноcеребеллумга киради. Тишсимон ядро, сутемизувчиларда бошқаларга нисбатан йирик бўлиб, нозик, ихчам кулранг модда қаватини ҳосил қилади ва мияча пўстлоғининг латерал қисмлари билан алоқа қилади. Бўлакча-тугунча (флоccулонодулар) бўлакнинг бўлакча (флоccулус) қисми мияча пўстлоғидаги чуқур ядролар билан алоқа қилмайдиган ягона соҳа. У вестинуляр ядроларга импулс беради.[9]
Чуқур ядролардаги кўпчилик нейронларда йирик ҳужайра таналари ва сферик дендрит дарахтлари (тахминан 400 μм радиусда) ва нейромедиатор сифатида глутамат кислотани ишлатади. Бу ҳужайралар мияча ташқаридаги турли нишонларга импулс беради. Улар билан аралаш жойлашган кам сондаги кичик ҳужайралар нейромедиатор сифатида ГАМКни ишлатади ва кўтарилувчи толалар чиқувчи пастки олива ядросига импулс юборади. Шундай қилиб, нуклео-оливар проексия ингибитор та’сир қилади, кўтарилувчи толалар бўлса ядрога қўзғатувчи та’сир қилади. Ядро ҳужайраларининг кичик кластери унга кўтарилувчи тола жўнатувчи олива ҳужайралари кластерига импулд юбориши ҳақида далил мавжуд; иккала йўналишда ҳам кучли ва мос келувчи топография мавжуд.[9]
Пуркине ҳужайраси аксони чуқур ядроларга кирганда тармоқланади ва катта ва кичик ҳужайраларга боғланади, лекин боғланишларнинг умумий сони бор йўғи 35 та (мушукларда). Аксинча, биргина чуқур ядро ҳужайраси тахминан 860 та Пуркине ҳужайрасидан импулс қабул қилади (яна мушукларда).[9]
Бўлимлари

Умумий анатомик нуқтайи назардан, мияча пўстлоғи гомоген тўқима массасидан иборат. Микроанатомик нуқтайи назардан ҳам бу массанинг ҳамма қисмлари ўхшаш ички тузилишга эга. Лекин, мияча бўлимларга бўлинганлиги ҳақида кўплаб ма’лумотлар бор. Йирик бўлимлар умумий “зона” деб аталади; улар янада кичикроқ бўлимларга бўлинади ва “микрозона” деб аталади.[25]
Бўлимли структура ҳақидаги илк тушунчалар мияча пўстлоғининг турли қисмларидаги ҳужайраларнинг ресептив фаолиятини ўрганиш мобайнида пайдо бўлди.[25] Тананинг ҳар бир қисми миячанинг махсус нуқталарида аксланади, лекин кўплаб марта такрорланиб аксланади ва “синган соматотопия” деб аталувчи ҳолатда жойлашади.[26] Бўлимларга бўлиниш ҳақидаги яққолроқ белгилар миячадаги ма’лум турдаги оқсилларни иммунобўяш орқали олинди. Энг машҳур маркерлар “зебринлар” деб аталади, чунки уларни бўяш зебра чизиқларини эслатувчи тасвирлар беради. Зебринлар ва бўлимларга ажратувчи бошқа маркалар ёрдамида ҳосил қилинган чизиқлар мияча пушталарига перпендикуляр йўналган – улар медиолатерал йўналишда тор, узун йўналишда чўзилган. Турли маркерлар турли хил чизиқ тўпламларини ҳосил қилади, жойлашувига кўра функсияси бўйича кенглиги ва узунлиги фарқ қилади, лекин уларнинг ҳаммаси умумий шаклга эга.[25]
1970-йиллар охирида Оскарссон пўстлоқ зоналари кичикроқ микрозоналарга бўлиниши мумкинлиги ҳақида айтди.[27] Микрозона – бир хил соматотопиc ресептив соҳага эга бўлган Пуркине ҳужайралари гуруҳи. Микрозоналар 1000 тагача Пуркине ҳужайралари тутади ва пўстлоқ пушталарига перпендикуляр жойлашган узун, тор чизиқларда жойлашган.[25] Диаграммада кўрсатилганидек, Пуркине ҳужайралари дендритлари микрозона билан бир йўналишда жойлашган, параллел толалар бўлса тўғри бурчак остида кесиб ўтади.[9]
Микрозона тузилишини фақатгина ресептив соҳа тавсифламайди: пастки олива ядросидан чиқувчи кўтарилувчи толалар ҳам тенг аҳамиятли. Кўтарилувчи толанинг тармоқлари (одатда 10 тагача рақамланади) одатда бир микрозонадаги Пуркине ҳужайраларини фаоллаштиради. Бир микрозонага кўтарилувчи толалар юборувчи олива нейронлари тирқишли туташмалар орқали бирлашган ва бу улар фаоллигини синхронлаштириб, микрозонадаги Пуркине ҳужайраларида миллисекундлик вақт давомида корреляцияланган мураккаб спайклар фаоллигига олиб келади.[25] Шунингдек, микрозонага кирувчи Пуркине ҳужайралари ҳаммаси аксонларини мияча чуқур ядроларидаги ўхшаш ҳужайра кластерларига юборади.[25] Савацимон ҳужайралар аксонлари узунлик йўналишида медиолатерал йўналишга қараганда бирмунча узунроқ ва бу уларни битта микрозонага катталик қилишига сабаб бўлади.[25] Бу тузилмалардаги тартиб микрозона ичидаги ҳужайраларнинг алоқалари микрозоналараро алоқалардан кўра бирмунча кучлироқлигига олиб келади.[25]
2005-йилда Ричард Аппс ва Мартин Гарwиcз микрозоналар йирикроқ мултизонал микрокомплекслар таркибига кириши ҳақидаги ма’лумотларни умулаштирдилар. Бундай микрокомплекс бир мияча чуқур нейронлари гуруҳига аксланувчи алоҳида пўстлоқ микрозоналаридан ташкил топган. Шунгдек мос олива нейронлари гуруҳлари шу микрокомплексга кирувчи барча микрозоналарга ва чуқур ядроларга аксланади,.[25]
Қон билан та’минланиши
Мияча уч жуфт асосий артериялардан қон олади: Юқориги мияча артерияси, олдинги пастки мияча артерияси, орқа пастки мияча артерияси. Юқориги артерия миячанинг юқориги соҳаларини қон билан та’минлайди. У юқориги юзага йўналади ва юмшоқ пардада олдинги ва орқа пастки мияча артериялари билан анастомозлар ҳосил қилувчи тармоқлар беради. Олдинги пастки мияча артерияси миячанинг пастки юзасининг олдинги қисмини қон билан та’минлайди. Орқа пастки мияча артерияси пастки юзага келганда медиал ва латерал тармоқларга ажралади. Медиал тармоқ мияча яримшарлари орасидаги кертик соҳага давом этади; латерал тармоқ бўлсамиячанинг пастки юзасини, асосан латерал қирғоқларини қон билан та’минлаб, олдинги пастки ва юқориги артериялар билан анастомозлар ҳосил қилади.
Функсияси
Мияча фуксияси бўйича муҳим ма’лумотлар унинг жароҳати оқибатларини ўрганиш орқали олинган. Мияча дисфунксияси бор ҳайвонлар ва одамларда, энг аввало тананинг миячанинг зараланган қисми билан бир томонида ҳаракат бошқарилуви билан муаммолар кузатилади. Улар умумий ҳаракатларни амалга оширишда давом этади, лекин аниқлик йўқолган, ҳаракатлари қалтироқли, координацияланмаган ёки вақти нотўғри. Мияча функсияси учун стандарт тест қўл узунлигидаги нишонга бармоқ учини тегизиш: соғлом одам бармоғини тез ва тўғри траекторияда ҳаракатлантиради, мияча жароҳати бор инсон бўлса секин ва қалтираб, бир қанча тўғриланишлар билан эришади. Ҳаракатга боғлиқ бўлмаган функсиялардаги етишмовчиликларни аниқлаш анча қийин. Шундай қилиб, ўн йиллар олдинги хулосага кўра миячанинг асосий функсияси ҳаракатни калибрация қилиш, ҳаракатни бошлаш ёки қайси ҳаракатлар бажарилишини ҳал қилиш эмас.[11]
1990-йилларда миячанинг функсияси фақат ҳаракатга боғлиқ деб ҳисобланган, лекин янги изланишлар бу қарашни сўроқ остига қўйди. Функсионал томографияда ўрганишлар тил, диққат, ҳаёлий тасаввур қилиш пайтида мияча фаоллашувини кўрсатди; корреляцияни ўрганиш мияча ва яримшарлар пўстлоғининг ҳаракатга боғлиқ бўлмаган соҳалари орасидаги алоқаларни кўрсатди; шунингдек мияча зарарланишига эга одамларда ҳаракатга боғлиқ бўлмаган турлича симптомлар кузатилди.[28][29] Хусусан, мияча когнитив аффектив синдроми ёки Счмаҳманн синдроми[30] катталарда[31] ва болаларда тасвирланган.[32] Миячанинг функсионал МРТ ёрдамида функсионал хариталаниши мияча пўстлоғининг ярмидан кўпи яримшарлар пўстлоғининг ассосиатив зоналари билан алоқаси борлигини тахмин қилиш имконини берди.[33]
Кенжи Доя миячанинг функсиясини ҳаракат-ҳолатга та’сири бўйича эмас, балки бажарадиган неврологик ҳисоблашлари орқали яхшироқ тушунтириш мумкин деб ҳисоблайди; мияча жуда кўп миқдордаги кўпроқ ёки камроқ мустақил модуллардан иборат, ҳаммасининг ички тузилиши ўхшаш геометриc тартибда ва тахминларга кўра бир хил ҳисоблашларни амалга оширади. Агарда модулнинг кирувчи ва чиқувчи боғлабишлари ҳаракат зоналари билан бўлса (кўпчилигида шунақа), унда модул ҳаракатда иштирок этади; аммо, агарда боғланишлар ҳаракатга боғлиқ бўлмаган соҳалар билан бўлса, модул ҳам ҳолатнинг ҳаракациз турларини корреляция қилиши кўринади. Шундай қилиб мияча ҳис-туйғу, ҳаракат ва ҳолат каби функсионал хусусиятлар бошқарилувига жалб қилинган.[34][35] Доя фикрига кўра, миячани муҳитнинг "ички моделлари" асосида ҳаракатни олдиндан башорат қилиб танлаш ёки назоратли ўрганиш мосламаси сифатида тушуниш энг тўғри. Ундан фарқли, басал ганглиа мустаҳкамловчи ўрганишни амалга оширса, яримшарлар пўстлоғи назорациз ўрганишни амалга оширади.[29][36]
Принсиплари
Мияча анатомиясининг нисбатан оддийлиги ва тартиблилиги эрта даврларда унинг ҳисоблаш функсияси ҳам шундай оддий бўлса керак деган тахмин қилишга асос бўлган. Бу мияча электрофизиологияси ҳақидаги илк китоблардан бўлган Жоҳн C. Эccлес, Масао Ито ва Жáнос Сзентáготҳаининг Мияча нейронал машина сифатида асарида ҳам келтирилган.[37] Гарчи мияча функсиясини тўлиқ тушуниш қийинлигича қолаётган бўлсада, камида тўртта муҳим принсиплар мавжуд: (1) феэдфорwард проcессинг (орада қайта ишлаш), (2) дивергенсия ва конвергенсия, (3) модуллилик ва (4) пластиклик.
- Феэдфорwард проcессинг: мияча бош миянинг бошқа қисмларидан (хусусан яримшарлар пўстлоғидан) сигнални қайта ишлаш деярли тўлиқ феэдфорwард усулида кечиши билан фарқ қилади. Феэдфорwард – сигналларнинг киришдан чиқишга тўғридан-тўғри узатилмай, жуда кичик даврий ички узатмалар билан ўтиши. Мавжуд бўлган кичик миқдордаги қайтиш умумий ингибирловчидан иборат; умумий қўзғатувчи ҳалқалар мавжуд эмас. Миячанинг феэдфорwард тартибида ишлаши, яримшарлар пўстлоғидан фарқли равишда, ўз-ўзини қувватловчи нейрал фаоллик ҳосил қила олмаслигини билдиради. Ҳалқага кирган сигналлар тартиб билан қайта ишланади ва чиқиб кетади. Эccлес, Ито ва Сзентáготҳаи ёзганидак, “Нейронал қўзғалишнинг ревербератор занжирларидаги ушбу олиб ташлашлар, миячани компютер каби ишлашида шубхасиз катта афзаллик беради. Чунки, тахминан нерв системасининг қолган қисмлари миячадан талаб қилувчи нарса комплекс ревербератор ҳалқаларни чиқариш эмас, балки ма’лум информация тўпламига тез ва аниқ жавоб беришдир."[38]
- Дивергенсия ва конвергенсия: одам миячасида, 200 миллон мохсимон толалардан келган ахборот 40 миллиард донадор ҳужайраларига тарқатилади, уларнинг параллел толалари 15 миллион Пуркине ҳужайраларида кесишади.[9] Узунлик чизиғИ ҳосил қилиб жойлашганлиги учун, микрозонага кирувчи 1000 та Пуркине ҳужайраси 100 миллионтагача параллел толалардан импулс олади ва 50 дан камроқ чуқур ядронинг ҳужайралари гуруҳига юборади.[25] шундай қилиб, мияча тармоғи кам миқдорда импулслар қабул қилиб, уларни жуда тартибли тузилган ички тармоқ орқали кенгайтириб қайта ишлайди ва натижани жуда кам сондаги ҳужайралар орқали ташқарига юборади.
- Модуллилик: Мияча тизими фуннксионал жиҳатдан юзлаб, минглаб кўп ёки кам даражадаги мустақилликка эга модулларга бўлинади. Барча модулар ўхшаш ички тузилишга эга, лекин кириш ва чиқиш турлича. Модул (Аппс ва Гарwиcз терминологияси бўйича мултизонал микрокомпартмент) пастки олива ядросидаги нейронларнинг кичик кластери, мияча пўстлоғидаги Пуркине ҳужайраларининг узун, тор чизиқлари тўплами (микрозоналар) ва мияча чуқур ядролаининг биридаги нейронларнинг кичик кластеридан ташкил топган. Турли модулар кирувчи импулсларни мохсимон ва параллел толалар орқали алмашиши мумкин, лекин қолган соҳалардаги функсиялари мустақил – бир модулдан чиқувчи импулс бошқа модулларга бевосита та’сиқ қилмайди.[25]
- Пластиклик: Пуркине ҳужайралари билан параллел толалар орасидаги ва мохсимон толалар билан чуқур ядро ҳужайралари орасидаги синапслар уларнинг кучи ўхгаришига сезгир. Битта мияча модулида, миллиард параллел толалардан келган импулс 50 дан камроқ чуқур ядро нейронларида кесишади ва ҳар бир параллел толанинг шу ядро ҳужайраларига та’сири тартибланган. Бу тартиб мияча кирувчи ва чиқувчи импулслари орасидаги муносабатни пухта созлаш учун улкан мосланувчанлик беради.[39]
Ўрганиш
Мияча ҳаракат ўрганишнинг ма’лум турларида муҳим рол ўйнаши ҳақида муҳим далиллар мавжуд. Мияча аниқ қатнашадиган топшириқлар, юқори тартибни талаб қилувчи ҳаракатлардир. Бу масалада бир қанча мунозаралар мавжуд я’ни ўрганиш миячанинг ўзида кечадими ёки миянинг бошқа қисмларида ўрганишга сабаб бўлувчи сигналлар юборадими.[39] Ўрганиш миячада кечиши ҳақидаги кўплаб назариялар Давид Марр[24] ва Жамес Албусларнинг,[6] ғоялари асосида яратилган. Улар кўтарилувчи толалар параллел тола – Пуркине ҳужайраси синапсида модификацияга сабаб бўлувчи ўргатувчи сигнал ташийди деган постулатни илгари сурдилар.[40] Марр тахминига кўра кўтарилувчи толадан келувчи импулс синхрон қўзғалган параллел тола импулсини кучайтиради. Кейинг кўплаб миячада ўрганиш моделлари, кўтарилувчи тола фаоллиги хато сигнал бўлиб, синхрон фаолланган параллел тола импулсларини кучсизлантиради деб тахмин қилувчи Албусга эргашган. Бу кейинги моделлардан ба’зилари, масалан Фужитанинг Адаптив Филтр модели[41] мияча функсиясини оптимал бошқарув назарияси билан тушунтиришга ҳаракат қилади.
Кўтарилувчи тола фаоллиги хато сигнал сифатида та’сир қилиши ҳақидаги ғоя кўплаб тажрибаларда синаб кўрилди, уларнинг ба’зилари қўллаб-қувватласа, қолгани гумонларни кучайтиради.[21] Гилберт ва Тҳачнинг 1977-йилда соҳадаги бошланғич тажрибаларида, маймунларнинг Пуркине ҳужайралари топшириқни бажаришни ўрганишда ижро даражаси паст бўлган даврларда кучайган мураккаб спайк – кўтарилувчи толалар фаоолигининг ишончли кўрсаткичи – фаоллигини кўрсатди.[42] Мушуклардаги ҳаракат ўрганиш бўйича бир қанча тадқиқотлар йўналтирилган ҳаракат ва уни чекловчи ҳаракатлар бирга келган вақтда мураккаб спайк фаоллигини кўрсатди. вестибуло-окуляр рефлекс (бош бурилганда визуал тасвирни ретинада ушлаб турувчи)ни тадқиқ қилиш кўтарилувчи тола “ретинал силжиш”ни чақирган, бевосита бўлмаган йўл билан.[21]
Миячада ўрганиш топшириқларидан кенг ўрганилганларидан бири кўз пирпирашини чиниқтириш(инг. эеблинк cондитионинг) парадигмаси бўлиб, товуш ёки ёруғлик каби нейтрал шартли та’сир, кўз пирпирашига сабаб бўлувчи ҳаво пудаш каби шарциз та’сир билан жуфтлаштирилади. Бундай шартли ва шарциз та’сирлар бир неча марта қайтарилганидан сўнг, шартли та’сир шарциз та’сир бўлмасидан олдин кўз юмилишини чақиради, шартли жавоб. Тажрибалар кўрсатишича интерпозицияланган ядро (мияча чуқур ядроларидан бири)нинг ма’лум қисми ёки мияча пўстлоғининг ма’лум нуқталаридаги шикастланишлар чиниқтирилган кўз юмиш жавобини тўхтатади. Агар миячадан чиқувчи импулслар фармакологик инактивация қилинса ва мияча ичи йўллари бутун бўлса, ҳайвон жавобни кўрсата олмаса ҳам ўрганиш содир бўлади, аксинча мияча ичи йўллари зарарланган бўлса ўрганиш кузатилмайди – бу фактлар биргаликда олинганда, ўрганиш мияча ичида кечишига кучли мисол бўлади.[43]
Назариялар ва ҳисоблаш моделлари

Мияча анатомик тузилиши ва функсияларини ўрганишдаги улкан база, уни назария учун унумдор майдонга айлантирди – мияча функсияси бўйича яратилган назариялар миянинг бошқа ҳар қандай қисмидагига нисбатан кўпдир, балки. Уларнинг ичида энг фарқлилари “ўрганиш назариялари” ва “ижро назариялари” – улар, миячанинг ўрганишдаги ролини ҳисобга олиш учун синаптик пластикликдан фойдаланувчи назариялар ва аксинча миячадаги сигнал просессинги асосидаги давом этаётган ҳаракат-ҳолатнинг хусусиятларини ҳисобга олувчи назариялар. Иккала турдаги бир қанча назариялар математик моделлар сифатида ишлаб чиқилган ва компютер ёрдамида симуляция қилинган.[40]
Эҳтимол энг бирламчи “ижро” назарияси Валентино Браитенбергнинг “кечиккан чизиқ” гипотезаси бўлгандир. Оригинал назария 1958-йилда Браитенберг ва Рогер Атwоод томонидан илгари сурилган, унга кўра параллел толалардан сигналнинг секин тарқатилиши кечикишга сабаб бўлади ва миячага ма’лум дарчаларда вақт муносабатларини сезишга ёрдам беради.[44] Тажриба натижалари назариянинг оригинал вариантини тасдиқламади, лекин Браитенберг модификацияланган версиялар билан баҳслашишда давом этди.[45] Мияча вақт системаси сифатида ишлаши ҳақидаги гипотезани Ричард Иврй ҳам қўллаб қувватлаган.[46] Бошқа нуфузли “ижро” назарияси Пеллионисз ва Ллинáсларнинг Тензор тармоқ назарияси бўлиб, мияча ҳисоблашлари сезгини ҳаракат координацияларига айлантириш ғоясини юқори даражада математик қайта ишлашган.[47]
“Ўрганиш” категориясининг деярли барча назариялари Марр ва Албус мақолаларидан олинган. Маррнинг 1969-йилдаги мақоласига кўра, мияча ўрганиш қурилмаси бўлиб, кўтарилувчи толалардаги элементар ҳаракат импулслари билан мохсимон толалардаги сезги импулсларини ассоциациялайди.[24] Албус 1971-йилда мияча Пуркине ҳужайралари персептрон каби ишлашини, нейрал илҳомланган абстраcт ўрганиш машинаси эканлигини та’кидлайди.[6] Марр ва Албус назариялари орасидаги асосий фарқ, Марр кўтарилувчи тола фаоллиги параллел тола синапси кучайишига сабаб бўлади деса, Албус кучсизлантиради деб ҳисоблайди. Албус ўз версиясининг Артикуляция бошқарувининг мияча модели (CМАC (Cеребеллар Модел Артиcулатион Cонтроллер)) деб номланган дастурий алгоритмини ҳам ишлаб чиқди ва бу кўплаб иловаларда синаб кўрилди.[48]
Клиник аҳамияти


Мияча зарарланиши одатда ҳаракатга боғлиқ симптомларга сабаб бўлади, деталлари миячанинг қайси қисми ва қандай зарарланганига боғлиқ. Флоccулонодулар бўлакнинг зарарланиши мувозанат йўқолиши ва қисман бузилган, тартибсиз қадам ташлаш, кенг доирада баланс қилишнинг қийинлашуви билан намоён бўлади.[11] Латерал зонанинг зарарланиши одатда иҳтиёрий ва режали, малакали ҳаракатларда муаммоларга сабаб бўлиб, ҳаракатнинг кучи, йўналиши, тезлиги ва амплитудасида хатоликларга сабаб бўлади. Бошқа кўринишларга киради, гипотония (пасайган мускул тонуси), дисартрия [[гапириш артикуляцияси билан муаммолар), дисметрия (масофани баҳолаш ёки ҳаракат чегараларида муаммолар), дисдиадохокинезия (пиёда юриш каби тез алмашиб турувчи ҳаракатларни бажара олмаслик), бузилган назорат рефлекси ёки ребоунд феномени, мақсадли қалтираш (инг. интентион тремор) (қарама-қарши мускул гуруҳларининг алмашиб турувчи қисқаришлари натижасида юзага келган ноихтиёрий ҳаракатлар).[49][50] Ўрта чизиқ соҳасидаги зарарланиш бутун тана ҳаракатларини бузади, латералроқ жойлашган жароҳатлар бўлса, оёқ-қўлларнинг нозик ҳаракатларини бузади. Миячанинг юқори қисми жароҳати қадам ташлаш бузилиши ва оёқ координацияларидаги муаммоларни чақирса, пастки қисми жароҳати панжа ва қўллларнинг координациялашмаган ва мақсадга кам йўналтирилган ҳаракатларга, тез бажаришдаги қийинчиликларга сабаб бўлади.[11] Бу ҳаракат симптомлари комплекси атаксия деб номланади.
Мияча муаммоларини аниқлаш учун неврологик текширувларга қадамни баҳолаш (кенг асосли қадам атаксия белгиси), бармоқ билан тегиш тестлари ва тана ҳолатини баҳолаш киради.[4] Мияча дисфунксияси аниқланганда, бўлиши мумкин бўлган ҳар қандай стуктура бузилишларини батафсил тасвирини олиш учун магнит резонанс томография ўтказилиши мумкин.[51]
Мияза зарарланишига сабаб бўлувчи тиббий муаммолар рўйҳати узун: инсулт, геморрагия, мия шиши, ўсмалар, алкоголизм, ўқ тегиш ёки портлашдан кейинг жисмоний жароҳатлар ва оливопонтоcеребеллар атрофия каби сурункали дегенератив ҳолатлар.[52][53] Мигрен бош оғриғининг ба’зи шакллари ҳам турли даражадаги вақтинчалик мияча дисфунксиясини чақириши мумкин.[54] Мияча зарарланишига прион касаллиги[55] ва Гуиллаин–Баррé синдромининг варианти бўлган Миллер Фишер синдроми каби инфексион ҳолатлар ҳам сабаб бўлиши мумкин.
Ёшга боғлиқ хусусиятлари
Одам миячаси ёшга боғлиқ ҳолатда ўзгаради. Бу ўзгаришлар миянинг бошқа қисмларидан фарқ қилиши мумкин. Юз ёшдан ошганларда, эпигенетик соат сифатида ма’лум бўлган тўқима ёши эпигенетик биомаркерига кўра, мияча миянинг энг ёш соҳаси (ва тана қисми): юз ёшлиларда тахминан қилинганидан тахминан 15 йилга ёшроқ.[56] Кейинчалик, ген экспрессияси ма’лумотлари одам миячасида яримшарлар пўстлоғига нисбатан кам ёшга боғлиқ зарарланишлар борлигини кўрсатди.[57] Ба’зи тадқиқотлар ҳужайралар сони ёки тўқима ҳажми камайишини кўрсатган, лекин бу масаладаги ма’лумотлар кўп эмас.[58][59]
Ривожланишдаги ва дегенератив бузилишлар

Туғма етишмовчиликлар, ирсий бузилишлар ва орттирилган ҳолат мияча тузилишига, шунингдек мияча функсиясига та’сир қилиши мумкин. Сабаб бўлувчи ҳолатни бартараф қилиб бўлмаса, ягона даво чораси одамларга шу муаммолар билан яшашга ёрдам беришдир.[60] Ҳомиладорликнинг 18-20 ҳафталарида ҳомила миячасини ултратовуш сканери орқали визуализация қилиш ҳомила нерв найчаси дефектлари скринингида 99% лик сезгирликка эга.[61]
Нормал ривожланишда, эндоген сониc ҳедгеҳог сигналлари ташқи донадор қаватдаги (ТДҚ) мияча донадор нейронлари прогениторларининг (МДНП) тез пролиферациясини стимуллайди. Мияча ривожланиши кеч эмбриогенез ва эрта постнатал даврда кичади, эрта ривожланишдаги МДНПнинг ТДҚ тепалигидаги пролиферацияси билан (сичқонда 7-постнатал кун).[62] МДНПлар охирида мияча донадор ҳужайралари (мияча грануляр нейронлари, МГН, деб ҳам аталади)га дифференсиацияланиб, ички донадор қаватга кўчади ва етук миячани ҳосил қилади (сичқонда 20-постнатал кун).[62] Сониc ҳедгеҳог сигналингни анормал фаоллашувига сабаб бўлувчи мутациялар Горлин синдроми бор одамларда ва генетик инженерланган сичқон моделларида мияча ўсмаси (медуллобластома)га нисбатан мойилликка сабаб бўлади.[63][64]
Мияча чувалчангсимон қисмининг туғма мажруҳлиги ёки тўлиқ ривожланмаслиги (гипоплазия) Дандй-Wалкер синдроми ва Жоуберт синдромининг иккови учун ҳам хос хусусият.[65][66] Жуда камдан-кам ҳолатларда мияча умуман бўлмаслиги мумкин.[67] Ирсий неврологик касалликлар бўлган Мачадо-Жосепҳ касаллиги, атаксия телеангиэктазия ва Фриэдреич атаксияси мияча йўқолиши билан боғлиқ прогрессив нейродегенерацияга сабаб бўлади.[52][60] Ўз навбатида, миячадан ташқаридаги туғма мия мажруҳлиги мияча тўқимасининг чуррасига сабаб бўлади ва Арнолд-Чиари мажруҳлигининг ба’зи шаклларида кўринади.[68]
Мияча дегенерацияси билан боғланган бошқа ҳолатларга идиопатик прогрессив неврологик бузилишлар бўлган кўплаб системалар атрофияси ва Рамсай Ҳунт синдроми И тип,[69][70] ва автоиммун бузилиш бўлган паранеопластик мияча дегенерацияси киради, бунда тананинг бошқа қисмида жойлашган ўсма миячада нейронлар йўқолишига олиб келувчи автоиммун жавобни чақиради.[71] Мияча атрофиясига берибери ва Wерниcке-Корсакофф синдромида кузатилувчи ўткир витамин Б1 (тиамин) етишмовчилиги[72] ёки витамин Э етишмовчилиги ҳам сабаб бўлиши мумкин[60]
Мияча атрофияси бошқа кўплаб неврологик бузилишлар: Ҳунтингтон касаллиги, тарқалган склероз,[55] эссенсиал титраш, прогрессив миоклоник эпилепсия ва Ниэманн–Пиcк касаллигида ҳам ўрганилган. Мияча атрофияси оғир металлар ёки фармасевтик ёки тинчлантирувчи дорилар каби токсинлардан заҳарланиш натижасида ҳам юзага келиши мумкин.[60]
Оғриқ
Мияча оғриқ шаклланишида қатнашади деган умумий консенсус мавжуд.[73][74] Мияча тушувчи cортиcо-cеребеллар йўллардан ҳам, кўтарилувчи спино-cеребеллар йўллардан ҳам, нуcлеус понтинеус ва пастки олива ядролари орқали оғриқ импулсларини қабул қилади. Бу информациянинг бир қисми ҳаракат системасига ўтказилади ва оғриқ интенсивлигига қараб ҳаракатдаги оғриқдан қочишни чақиради.
Бу бевосита ва билвосита оғриқ импулслари, узоқ муддатли оғриқдан қочиш ҳаракатига сабаб бўлади деб ҳисобланади. Натижада сурункали гавдани тутишдаги ўзгаришлар ва ўз навбатида вестибуляр ва проприосептив ядроларнинг анатомик ва функсионал ўзгариши юзага келади. Шундай қилиб, сурункали нейропатик оғриқ ҳиндбраинда, шунингдек миячада макроскопик анатомик қайта моделланишни чақириши мумкин.[23] Бу қайта моделланишнинг магнитудаси ва нейрон прогенитор маркерларини индуксия қилиш бу ўзгаришларда вояга етганлар нейрогенезининг ҳиссаси борлигини кўрсатади.
Солиштирма анатомия ва эволюция

Мияча йўллари умуртқалиларнинг барча синфларида: балиқлар, судралиб юрувчилар, қушлар ва сутемизувчиларда ўхшаш.[75] Шунингдек яхши ривожланган бош мияга эга бошоёқлилар, масалан саккизоёқлар аналогик мия тузилишига эга.[76] Мияча бош мияга эга барча ҳайвон турларида муҳим функсиялар бажариши ҳақида далиллар мавжуд.
Ҳар хил умуртқалилар турларида мияча ўлчами ва шакли фарқ қилади. Амфибияларда у кам ривожланган, лампрейлар ва ҳагфишда миячани мия устунидан зўрға ажратволиш мумкин. Гарчи бу гуруҳларда спиноcеребеллум мавжуд бўлсада, бирламчи структуралар кичик, жуфт ядролар вестибулоcеребеллумга мос келади.[77] Мияча рептилияларда йирикроқ, қушларда янаям йирикроқ, сутемизувчиларда унданам йирик. Одамлардаги йирик жуфт ва ихчам бўлаклар сутемизувчилар учун хос, лекин умуман, мияча бошқа гуруҳларда ягона медиал бўлак ва силлиқ ёки бироз бурмалардан иборат. Сутемизувчиларда неоcеребеллум миячанинг масса бўйича энг катта қисми, лекин бошқа умуртқалиларга спиноcеребеллум хос.[77]
Тоғайли балиқлар ва суякли балиқларда мияча одатдан ташқари йирик ва мураккаб. Муҳим хусусияти, у ички тузилиши билан сутемизувчилар миячасидан фарқ қилади: балиқ миячаси ажралган мияча чуқур ядролари тутмайди. Аксинча, Пуркине ҳужайраларининг бирламчи нишони мияча пўстлоғи бўйлаб тарқалган махсус ҳужайралар бўлиб, улар сутемизувчиларда йўқ. Мормйрид балиқлари (кучсиз электросенситив чучук сув балиқлари оиласи)да мияча қолган мия қисмлари бирга олинганидан йирикроқ. Унинг энг катта қисми валвула деб аталувчи махсус структура бўлиб, ноодатий тартибдаги архитектураси мавжуд ва асосий импулсларни электросенсор системадан қабул қилади.[78]
Сутемизувчилар миячасининг ўзига хос хусусияти латерал бўлакларнинг кенгайганлиги бўлиб, асосий алоқалари неокортекс билан бўлади. Маймунлар йирик думсиз маймунларга қараб ривожланиб борган сари, латерал толаларнинг кенгайиши давом этиб, ўз навбатида неокортекснинг фронтал бўлаклари кенгайиши билан кечади. Қадимги маймунсимон одам (ҳоминид)лар ва Ҳомо сапиэнсда Плеистоcене даври ўрталаригача мияча кенгайишда давом этди, лекин фронтал бўлаклар анча тез кенгайди. Одам эволюциясининг энг яқин даврлари, мияча нисбий ўлчамларининг ошиши билан боғлиқ бўлиши мумкин, мияча кенгайиб бориши билан неокортекс ўз ўлчамларини қандайдир равишда камайтирган.[79] одам миячаси ўлчамлари, миянинг бошқа қисмларига нисбатан олиб қаралганда, катта яримшарлар ўлчами камайиши билан катталашиб бормоқда.[80] Ҳаракат топшириқлари ривожланиши ва бажарилиши, жисмларнинг самовий ҳолатини аниқлай олиш қобилияти ва ўрганишнинф миячад кечиши, миячанинг ўсиши одамнинг катта когнитив қобилиятлари билан қайсидир даражада корреляцияга эга эканлиги ҳақида ўйлашга сабаб бўлади.[81] Миячанинг латерал яримшарлари ҳозирги кунда, одам ва одамсимон маймунларда қолган маймунларга нисбатан 2,7 марта каттароқ.[80] Мияча ўлчамидаги бу ўзгаришларни мускул массасининг катталиги билан тушунтириб бўлмайди. Бу мияча ривожланиши миянинг бошқа қисмлари билан қалин боғланганлиги ёки миячада кечувчи нейрал фаолиятлар йирик одамсимон маймунлар (Ҳоминидаэ) эволюциясида муҳим бўлганлигини кўрсатади. Миячанинг когнитив функсиялардаги ролига кўра, унинг ўлчамлари ошиши когнитив кенгайишда рол ўйнаган бўлиши мумкин.[80]
Миячага ўхшаш структуралар
Кўп умуртқалилар турларида, мияча ва бир ёки кўп миячага ўхшаш структуралар, ситоархитектоника ва нейрокимёвий жиҳатдан миячани эслатувчи бош мия соҳалари, мавжуд.[75] Сутемизувчилардан топилган ягона миячага ўхшаш структура орқа кохлеар ядро (ОКЙ) бўлиб, тўғридан-тўғри эшитув нервидан импулс қабул қилувчи иккита бирламчи сезув ядросининг биридир. ОКЙ қаватли структура бўлиб, пастки қаватни ташкил қилувчи донадор ҳужайралар миячадаги каби, юза қаватга борувчи ва унда горизонтал тарқалувчи параллел толаларни беради. Юза қават ГАМКергик cартwҳеэл ҳужайралар тизимидан ташкил топган бўлиб, улар анатомик ва кимёвий жиҳатдан Пуркине ҳужайраларга ўхшаш – улар параллел толалардан импулс қабул қилади, лекин кўтарилувчи толаларга ўхшаш структуралар ёқ. ОКЙнинг ташқарига импулс чиқарувчи нейронлари пирамидасимон ҳужайралардир. Улар глутаматергик, лекин ба’зи жиҳатлари билан Пуркине толаларига ҳам ўхшайди – уларда тиканаксимон, текисланган юза дендритлари параллел толалардан импулс қабул қилади, лекин уларда шунингдек эшитув нерви толаларидан импулс қабул қилувчи базал дендритлари ҳам мавжуд бўлиб, улар ОКЙда параллел толаларга нисбатан тўғри бурчак остида жойлашади. ОКЙ кемирувчилар ва бошқа кичик ҳайвибларда яхши ривожланган бўлиб ва приматларда анчагина кичрайган. Унинг функсияси яхши ўрганилмаган; энг машҳур тахмин товуш йўналишини аниқлаш билан боғлиқ.[82]
Кўплаб балиқ ва амфибия турларида сувдаги тўлқинлар босимини сезувчи ён чизиқ системаси мавжуд. Ён чизиқ органидан бирламчи импулс қабул қилувчи мия қисмларидан бири, медиал октаволатерал ядро, миячага ўхшаш тузилишга эга бўлибм донадор ҳужайралари ва параллел толалари бор. Электр сезувчи балиқларда электросенсор ситемадан импулс дорсал октаволатерал ядрога боради, у ҳам миячага ўхшаш структурага эга. Рай-финнед балиқлари кўрув дўмбоғида миячага ўхшаш қават – маргинал қават мавжуд.[75]
Ушбу барча миячага ўхшаш структуралар сезги билан боғланган, ҳаракат билан эмас. Уларнинг барчасида Пуркинега ўхшаш нейронлар билан модификацияланувчи синапс ҳосил қилувчи параллел толаларни берадиган донадор ҳужайралар мавжуд, лекин миячадан фарқли биронтасида кўтарилувчи толалар йўқ – бунинг ўрнига улар периферик сезги органларидан тўғридан-тўғри импулс қабул қилади. Уларнинг функсиялари аниқланмаган, лекин энг ишончли тахмин, улар сезги импулсларини қандайдир мураккаб йўл билан қайта ишлайди ва бу эҳтимол тана ҳолати ўзгаришларини компенсация қилиш учундир.[75] Аслини олганда, Жамес М. Боwер ва бошқалар қисман бу структуралар ва қисман мияча устидаги тадқиқотлар асосида мияча ўзи фундаментал жиҳатдан сенсор структура деган фикрни берадилар: унинг ҳаракат бошқаруви сезги сигналлари асосида танани қўзғатиши орқали амалга ошади.[83] Боwернинг фикрларига қарамай, мияча сутемизувчилар ҳаракатига бевосита та’сир қилиши ҳақида кучли далиллар мавжуд.[84][85]
Тарихи

Тавсифлар
Ҳаттоки илк анатомлар ҳам, миячани ўзига хос қиёфаси туфайли фарқлай олганлар. Аристотел ва Ҳеропҳилус (Галендан иқтибос) παρεγκεφαλίς (парегкепҳалис) деб аташган, бош мияни ўзини бўлса ἐγκέφαλος (эгкепҳалос) деб аташган. Галеннинг кенгайтирилган тавсифи мавжудларнинг энг қадимгиси. У миячани ҳаракат нервларининг манбаси деб тахмин қилган.[86]
Кейинги кўзга кўринарли ривожланишлар Ренессансгача кузатилмаган. Везалий миячани қисқача та’рифлаган ва анатомияси анчагина тўлиқроқ ҳолатда Тҳомас Wиллис томонидан 1664-йилда ёритилган. ХВИИИ аср давомида анатомия бўйича кўп ишлар қилинган, лекин ХИХ аср бошларидагина мияча функсияси бўйича илк ма’лумотлар олинди. Луиги Роландо 1809-йилда мияча зарарланиши ҳаракатдаги бузилишларга сабаб бўлиши ҳақидаги муҳим топилмани ма’лум қилди. Жеан Пиэрре Флоуренс ХИХ асрнинг биринчи ярмида батафсил тажриба ишларини олиб борди. Бу тажрибалар мияча зарарланишига эга ҳайвонлар ҳамон ҳаракатлана олиши мумкинлиги, лекин координация йўқолиши (ғалати ҳаракатлар, қўпол қадамлар ва мускуллар кучсизланиши)ни, шунингдек, зарарланиш жуда катта бўлмаса деярли тикланиши мумкинлиги кўрсатди.[87] ХХ аср бошланганида, миячанинг асосий функсияси ҳаракат бошқарилуви билан боғлиқлиги кўпчилик томонидан тасдиқланганди; ХХ аср биринчи ярмида одамдаги мияча касалликлари клиник симптомларининг бир қанча батафсил тавсифлари яратилди.[4]
Манбалар
- ↑ Ҳодос, Wиллиам (2009), „Эволутион оф Cеребеллум“, Энcйcлопедиа оф Неуросcиэнcе, Спрингер, 1240–1243-бет, дои:10.1007/978-3-540-29678-2_3124, ИСБН 978-3-540-23735-8
- ↑ Wолф У, Рапопорт МЖ, Счwеизер ТА (2009). „Эвалуатинг тҳе аффеcтиве cомпонент оф тҳе cеребеллар cогнитиве аффеcтиве сйндроме“. Жоурнал оф Неуропсйчиатрй анд Cлиниcал Неуросcиэнcес. 21-жилд, № 3. 245–53-бет. дои:10.1176/жнп.2009.21.3.245. ПМИД 19776302.
- ↑ Счмаҳманн, Жеремй Д.; Cаплан, Давид (1-феврал 2006-йил). „Cогнитион, эмотион анд тҳе cеребеллум“. Браин (инглизча). 129-жилд, № 2. 290–292-бет. дои:10.1093/браин/аwҳ729. ИССН 0006-8950. ПМИД 16434422.
{{cите магазине}}: CС1 маинт: дате формат () - ↑ 4,0 4,1 4,2 4,3 Фине ЭЖ, Ионита CC, Лоҳр Л (Деcембер 2002). „Тҳе ҳисторй оф тҳе девелопмент оф тҳе cеребеллар эхаминатион“. Семинарс ин Неурологй. 22-жилд, № 4. 375–84-бет. дои:10.1055/с-2002-36759. ПМИД 12539058.
- ↑ 5,0 5,1 Пурвес, Дале. Неуросcиэнcе, 5тҳ, Сундерланд, Масс.: Синауэр, 2011 — 417–423-бет. ИСБН 978-0-87893-695-3.
- ↑ 6,0 6,1 6,2 Албус ЖС (1971). „А тҳеорй оф cеребеллар фунcтион“. Матҳ. Биосcиэнcес. 10-жилд, № 1–2. 25–61-бет. CитеСеэрХ 10.1.1.14.7524. дои:10.1016/0025-5564(71)90051-4.
- ↑ Пурвес, Дале Пурвес. Неуросcиэнcе., 4тҳ, Неw Ёрк: W. Ҳ. Фреэман, 2007 — 197–200-бет. ИСБН 978-0-87893-697-7.
- ↑ „Чаптер 20“, Грай'с анатомй : тҳе анатомиcал басис оф cлиниcал праcтиcе, 40тҳ Сусан Стандринг: , Лондон: Чурчилл Ливингстоне, 2008 — 297-бет. ИСБН 978-0-8089-2371-8.
- ↑ 9,00 9,01 9,02 9,03 9,04 9,05 9,06 9,07 9,08 9,09 9,10 9,11 9,12 9,13 9,14 9,15 9,16 9,17 9,18 9,19 9,20 9,21 9,22 9,23 9,24 „Ч. 7 Cеребеллум“, Тҳе Сйнаптиc Организатион оф тҳе Браин Шепҳерд ГМ: . Неw Ёрк: Охфорд Университй Пресс, 2004. ИСБН 978-0-19-515955-4.
- ↑ Ҳерcулано-Ҳоузел С (2010). „Cоординатед сcалинг оф cортиcал анд cеребеллар нумберс оф неуронс“. Фронтиэрс ин Неуроанатомй. 4-жилд. 12-бет. дои:10.3389/фнана.2010.00012. ПМC 2839851. ПМИД 20300467.
- ↑ 11,00 11,01 11,02 11,03 11,04 11,05 11,06 11,07 11,08 11,09 „Тҳе cеребеллум“, Принcиплес оф Неурал Сcиэнcе, 2нд эдитион. Неw Ёрк: Элсевиэр, 1985 — 502–522-бет.
- ↑ Снидер, Раймонд; Стоwелл, Аверилл (1-ноябр 1944-йил). „Реcеивинг Ареас оф тҳе Таcтиле, Аудиторй, анд Висуал Сйстемс ин тҳе Cеребеллум“. Жоурнал оф Неуропҳйсиологй. 7-жилд, № 6. 331–357-бет. дои:10.1152/жн.1944.7.6.331.
{{cите магазине}}: CС1 маинт: дате формат () - ↑ Cонcисе Техт оф Неуросcиэнcе, 2нд, Липпинcотт Wиллиамс & Wилкинс, 2000. ИСБН 978-0-683-30460-2.
- ↑ Петерсен СЕ, Фох ПТ, Поснер МИ, Минтун М, Раичле МЕ (1989). „Поситрон эмиссион томограпҳиc студиэс оф тҳе проcессинг оф сингле wордс“. Жоурнал оф Cогнитиве Неуросcиэнcе. 1-жилд, № 2. 153–70-бет. дои:10.1162/жоcн.1989.1.2.153. ПМИД 23968463.
- ↑ Тимманн Д, Даум И (2007). „Cеребеллар cонтрибутионс то cогнитиве фунcтионс: а прогресс репорт афтер тwо деcадес оф ресеарч“. Cеребеллум. 6-жилд, № 3. 159–62-бет. дои:10.1080/14734220701496448. ПМИД 17786810.
- ↑ Стриcк ПЛ, Дум РП, Фиэз ЖА (2009). „Cеребеллум анд нонмотор фунcтион“. Аннуал Ревиэw оф Неуросcиэнcе. 32-жилд. 413–34-бет. дои:10.1146/аннурев.неуро.31.060407.125606. ПМИД 19555291.
- ↑ Буcкнер РЛ (Оcтобер 2013). „Тҳе cеребеллум анд cогнитиве фунcтион: 25 еарс оф инсигҳт фром анатомй анд неуроимагинг“. Неурон. 80-жилд, № 3. 807–15-бет. дои:10.1016/ж.неурон.2013.10.044. ПМИД 24183029.
- ↑ Счwеигҳофер Н, Доя К, Курода С (Марч 2004). „Cеребеллар аминергиc неуромодулатион: тоwардс а фунcтионал ундерстандинг“. Браин Ресеарч. Браин Ресеарч Ревиэwс. 44-жилд, № 2–3. 103–16-бет. дои:10.1016/ж.браинресрев.2003.10.004. ПМИД 15003388.
- ↑ Фелизола СЖ, Накамура Й, Оно Й, Китамура К, Кикучи К, Онодера Й, Исе К, Такасе К, Сугаwара А, Ҳаттангадй Н, Раиней WЕ, Сатоҳ Ф, Сасано Ҳ (Април 2014). „ПCП4: а регулатор оф алдостероне сйнтҳесис ин ҳуман адреноcортиcал тиссуэс“. Жоурнал оф Молеcулар Эндоcринологй. 52-жилд, № 2. 159–67-бет. дои:10.1530/ЖМЕ-13-0248. ПМC 4103644. ПМИД 24403568.
- ↑ Эccлес ЖC, Ллинáс Р, Сасаки К (Жануарй 1966). „Тҳе эхcитаторй сйнаптиc аcтион оф cлимбинг фибрес он тҳе Пуркинже cеллс оф тҳе cеребеллум“. Жоурнал оф Пҳйсиологй. 182-жилд, № 2. 268–96-бет. дои:10.1113/жпҳйсиол.1966.сп007824. ПМC 1357472. ПМИД 5944665.
- ↑ 21,0 21,1 21,2 21,3 Симпсон ЖИ, Wйлиэ ДР, Де Зеэуw CИ (1996). „Он cлимбинг фибер сигналс анд тҳеир cонсеқуэнcе(с)“. Беҳав. Браин Сcи. 19-жилд, № 3. 384–398-бет. дои:10.1017/С0140525Х00081486.
- ↑ Wҳитней ЭР, Кемпер ТЛ, Росене ДЛ, Бауман МЛ, Блатт ГЖ (Фебруарй 2008). „Cалбиндин-Д28к ис а море релиабле маркер оф ҳуман Пуркинже cеллс тҳан стандард Ниссл стаинс: а стереологиcал эхперимент“. Жоурнал оф Неуросcиэнcе Метҳодс. 168-жилд, № 1. 42–7-бет. дои:10.1016/ж.жнеуметҳ.2007.09.009. ПМИД 17961663.
- ↑ 23,0 23,1 Русанесcу Г, Мао Ж (Фебруарй 2017). „Перипҳерал нерве инжурй индуcес адулт браин неурогенесис анд ремоделлинг“. Жоурнал оф Cеллулар анд Молеcулар Медиcине. 21-жилд, № 2. 299–314-бет. дои:10.1111/жcмм.12965. ПМC 5264155. ПМИД 27665307.
- ↑ 24,0 24,1 24,2 Марр Д (Жуне 1969). „А тҳеорй оф cеребеллар cортех“. Жоурнал оф Пҳйсиологй. 202-жилд, № 2. 437–70-бет. дои:10.1113/жпҳйсиол.1969.сп008820. ПМC 1351491. ПМИД 5784296.
- ↑ 25,00 25,01 25,02 25,03 25,04 25,05 25,06 25,07 25,08 25,09 25,10 Аппс Р, Гарwиcз М (Април 2005). „Анатомиcал анд пҳйсиологиcал фоундатионс оф cеребеллар информатион проcессинг“. Натуре Ревиэwс. Неуросcиэнcе. 6-жилд, № 4. 297–311-бет. дои:10.1038/нрн1646. ПМИД 15803161.
- ↑ Манни Э, Петросини Л (Марч 2004). „А cентурй оф cеребеллар соматотопй: а дебатед репресентатион“. Натуре Ревиэwс. Неуросcиэнcе. 5-жилд, № 3. 241–9-бет. дои:10.1038/нрн1347. ПМИД 14976523.
- ↑ Осcарссон О (1979). „Фунcтионал униц оф тҳе cеребеллум-сагиттал зонес анд миcрозонес“. Трендс Неуросcи. 2-жилд. 143–145-бет. дои:10.1016/0166-2236(79)90057-2.
- ↑ Тҳе Ҳандбоок оф Cогнитиве Неуропсйчологй: Wҳат Дефиcиц Ревеал абоут тҳе Ҳуман Минд. Псйчологй Пресс, 2001 — 481-бет. ИСБН 978-1-84169-044-5.
- ↑ 29,0 29,1 Доя К (Деcембер 2000). „Cомплементарй ролес оф басал ганглиа анд cеребеллум ин леарнинг анд мотор cонтрол“. Cуррент Опинион ин Неуробиологй. 10-жилд, № 6. 732–9-бет. дои:10.1016/С0959-4388(00)00153-7. ПМИД 11240282.
- ↑ Манто М, Мариëн П (2015). „Счмаҳманн'с сйндроме - идентифиcатион оф тҳе тҳирд cорнерстоне оф cлиниcал атахиологй“. Cеребеллум & Атахиас. 2-жилд. 2-бет. дои:10.1186/с40673-015-0023-1. ПМC 4552302. ПМИД 26331045.
- ↑ Счмаҳманн ЖД, Шерман ЖC (Април 1998). „Тҳе cеребеллар cогнитиве аффеcтиве сйндроме“. Браин. 121-жилд, № 4. 561–79-бет. дои:10.1093/браин/121.4.561. ПМИД 9577385.
- ↑ Левисоҳн Л, Cронин-Голомб А, Счмаҳманн ЖД (Май 2000). „Неуропсйчологиcал cонсеқуэнcес оф cеребеллар тумоур ресеcтион ин чилдрен: cеребеллар cогнитиве аффеcтиве сйндроме ин а паэдиатриc популатион“. Браин. 123-жилд, № 5. 1041–50-бет. дои:10.1093/браин/123.5.1041. ПМИД 10775548.
- ↑ Буcкнер РЛ, Криэнен ФМ, Cастелланос А, Диаз ЖC, Ео БТ (Новембер 2011). „Тҳе организатион оф тҳе ҳуман cеребеллум эстиматед бй интринсиc фунcтионал cоннеcтивитй“. Жоурнал оф Неуропҳйсиологй. 106-жилд, № 5. 2322–45-бет. дои:10.1152/жн.00339.2011. ПМC 3214121. ПМИД 21795627.
- ↑ Ҳернáэз-Гоñи П, Тирапу-Устáрроз Ж, Иглесиас-Фернáндез Л, Луна-Ларио П (Новембер 2010). „Партиcипаcиóн дел cеребело эн ла регулаcиóн дел афеcто, ла эмоcиóн й ла cондуcта“ [Тҳе роле оф тҳе cеребеллум ин тҳе регулатион оф аффеcтион, эмотион анд беҳавиор]. Ревиста де Неурологíа (Спаниш). 51-жилд, № 10. 597–609-бет. дои:10.33588/рн.5110.2010394. ПМИД 21069639.
{{cите магазине}}: CС1 маинт: унреcогнизед лангуаге () - ↑ Турнер БМ, Парадисо С, Марвел CЛ, Пиэрсон Р, Болес Понто ЛЛ, Ҳичwа РД, Робинсон РГ (Марч 2007). „Тҳе cеребеллум анд эмотионал эхпериэнcе“. Неуропсйчологиа. 45-жилд, № 6. 1331–41-бет. дои:10.1016/ж.неуропсйчологиа.2006.09.023. ПМC 1868674. ПМИД 17123557.
- ↑ Доя К (Оcтобер 1999). „Wҳат аре тҳе cомпутатионс оф тҳе cеребеллум, тҳе басал ганглиа анд тҳе cеребрал cортех?“. Неурал Нетwоркс. 12-жилд, № 7–8. 961–974-бет. дои:10.1016/С0893-6080(99)00046-5. ПМИД 12662639.
- ↑ Тҳе Cеребеллум ас а Неуронал Мачине. Спрингер-Верлаг, 1967.
- ↑ Тҳе Cеребеллум ас а Неуронал Мачине, п. 311
- ↑ 39,0 39,1 Бойден ЭС, Катоҳ А, Раймонд ЖЛ (2004). „Cеребеллум-депендент леарнинг: тҳе роле оф мултипле пластиcитй мечанисмс“. Аннуал Ревиэw оф Неуросcиэнcе. 27-жилд. 581–609-бет. дои:10.1146/аннурев.неуро.27.070203.144238. ПМИД 15217344.
- ↑ 40,0 40,1 Ҳоук ЖC, Буcкингҳам ЖТ, Барто АГ (1996). „Моделс оф тҳе cеребеллум анд мотор леарнинг“ (ПДФ). Беҳав. Браин Сcи. 19-жилд, № 3. 368–383-бет. CитеСеэрХ 10.1.1.118.2997. дои:10.1017/С0140525Х00081474. 2017-08-09да асл нусхадан (ПДФ) архивланди.
- ↑ Фужита М (1982). „Адаптиве филтер модел оф тҳе cеребеллум“. Биологиcал Cйбернетиcс. 45-жилд, № 3. 195–206-бет. дои:10.1007/БФ00336192. ПМИД 7171642.
- ↑ Гилберт ПФ, Тҳач WТ (Жуне 1977). „Пуркинже cелл аcтивитй дуринг мотор леарнинг“. Браин Ресеарч. 128-жилд, № 2. 309–28-бет. дои:10.1016/0006-8993(77)90997-0. ПМИД 194656.
- ↑ Чристиан КМ, Тҳомпсон РФ (2003). „Неурал субстратес оф эеблинк cондитионинг: аcқуиситион анд ретентион“. Леарнинг & Меморй. 10-жилд, № 6. 427–55-бет. дои:10.1101/лм.59603. ПМИД 14657256.
- ↑ Браитенберг В, Атwоод РП (Фебруарй 1958). „Морпҳологиcал обсерватионс он тҳе cеребеллар cортех“. Жоурнал оф Cомпаративе Неурологй. 109-жилд, № 1. 1–33-бет. дои:10.1002/cне.901090102. ПМИД 13563670.
- ↑ Браитенберг В, Ҳеcк Д, Султан Ф (Жуне 1997). „Тҳе детеcтион анд генератион оф сеқуэнcес ас а кей то cеребеллар фунcтион: эхперименц анд тҳеорй“. Беҳавиорал анд Браин Сcиэнcес. 20-жилд, № 2. 229–45, дисcуссион 245–77-бет. дои:10.1017/с0140525х9700143х. ПМИД 10096998.
- ↑ Иврй РБ, Спенcер РМ, Зелазник ҲН, Диэдричсен Ж (Деcембер 2002). „Тҳе cеребеллум анд эвент тиминг“. Анналс оф тҳе Неw Ёрк Аcадемй оф Сcиэнcес. 978-жилд, № 1. 302–17-бет. Бибcоде:2002НЙАСА.978..302И. дои:10.1111/ж.1749-6632.2002.тб07576.х. ПМИД 12582062.
- ↑ Пеллионисз А, Ллинáс Р (1982). „Спаcе-тиме репресентатион ин тҳе браин. Тҳе cеребеллум ас а предиcтиве спаcе-тиме метриc тенсор“. Неуросcиэнcе. 7-жилд, № 12. 2949–70-бет. дои:10.1016/0306-4522(82)90224-Х. ПМИД 7162624.
- ↑ Ҳорвáтҳ Г (2003). „CМАC: Реcонсидеринг ан олд неурал нетwорк“ (ПДФ). Интеллигент Cонтрол Сйстемс анд Сигнал Проcессинг. 2020-05-20да асл нусхадан (ПДФ) архивланди. Қаралди: 2009-12-24.
- ↑ „Эхаминатион оф Cоординатион“, Пҳйсиcал Реҳабилитатион. Пҳиладелпҳиа: Ф. А. Давис, 2007 — 193–225-бет.
- ↑ Мариëн П, Манто М. Тҳе лингуистиc cеребеллум. Лондон, УК: Аcадемиc Пресс, 2016 — 337–351-бет. ИСБН 978-0-12-801608-4.
- ↑ Гилман С (Марч 1998). „Имагинг тҳе браин. Сеcонд оф тwо парц“. Неw Энгланд Жоурнал оф Медиcине. 338-жилд, № 13. 889–96-бет. дои:10.1056/НЕЖМ199803263381307. ПМИД 9516225.
- ↑ 52,0 52,1 „НИНДС Атахиас анд Cеребеллар ор Спиноcеребеллар Дегенератион Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (16-апрел 2014-йил). 9-феврал 2015-йилда асл нусхадан архивланган. Қаралди: 2-феврал 2015-йил.(Wайбаcк Мачине сайтида 2015-02-09 санасида архивланган)
- ↑ „Ветеранс оф Ирақ, Афгҳанистан Шоw Браин Чангес Релатед то Эхплосион Эхпосуре“. Сcиэнтифиc Америcан (15-январ 2016-йил). 20-январ 2016-йилда асл нусхадан архивланган. Қаралди: 21-январ 2016-йил.
- ↑ Винcент М, Ҳаджикҳани Н (Жуне 2007). „Тҳе cеребеллум анд миграине“. Ҳеадаче. 47-жилд, № 6. 820–33-бет. дои:10.1111/ж.1526-4610.2006.00715.х. ПМC 3761082. ПМИД 17578530.
- ↑ 55,0 55,1 „НИНДС Cеребеллар Дегенератион Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (28-феврал 2014-йил). 18-феврал 2015-йилда асл нусхадан архивланган. Қаралди: 2-феврал 2015-йил.(Wайбаcк Мачине сайтида 2016-12-02 санасида архивланган)
- ↑ Ҳорватҳ С, Маҳ В, Лу АТ, Wоо ЖС, Чои ОW, Жасинска АЖ, Рианчо ЖА, Тунг С, Cолес НС, Браун Ж, Винтерс ҲВ, Cолес ЛС (Май 2015). „Тҳе cеребеллум агес слоwлй аccординг то тҳе эпигенетиc cлоcк“ (ПДФ). Агинг. 7-жилд, № 5. 294–306-бет. дои:10.18632/агинг.100742. ПМC 4468311. ПМИД 26000617. 2015-05-25да асл нусхадан архивланди (ПДФ). (Wайбаcк Мачине сайтида 2016-03-18 санасида архивланган)
- ↑ Фрасер ҲБ, Кҳаитович П, Плоткин ЖБ, Пääбо С, Эисен МБ (Септембер 2005). „Агинг анд гене эхпрессион ин тҳе примате браин“. ПЛОС Биологй. 3-жилд, № 9. э274-бет. дои:10.1371/жоурнал.пбио.0030274. ПМC 1181540. ПМИД 16048372.
- ↑ Андерсен ББ, Гундерсен ҲЖ, Паккенберг Б (Новембер 2003). „Агинг оф тҳе ҳуман cеребеллум: а стереологиcал студй“. Жоурнал оф Cомпаративе Неурологй. 466-жилд, № 3. 356–65-бет. дои:10.1002/cне.10884. ПМИД 14556293.
- ↑ Раз Н, Гуннинг-Дихон Ф, Ҳеад Д, Wиллиамсон А, Аcкер ЖД (2001). „Аге анд сех дифференcес ин тҳе cеребеллум анд тҳе вентрал понс: а проспеcтиве МР студй оф ҳеалтҳй адулц“ (ПДФ). Америcан Жоурнал оф Неурорадиологй. 22-жилд, № 6. 1161–7-бет. ПМИД 11415913. 2008-12-17да асл нусхадан архивланди (ПДФ).
- ↑ 60,0 60,1 60,2 60,3 Тҳе Мерcк Мануал оф Диагносис анд Тҳерапй, 18тҳ, Wҳитеҳоусе Статион, Неw Жерсей: Мерcк Ресеарч Либрариэс, 2006 — 1886–1887-бет.
- ↑ Cампбелл Ж, Гилберт WМ, Ниcолаидес КҲ, Cампбелл С (Аугуст 1987). „Ултрасоунд сcреэнинг фор спина бифида: cраниал анд cеребеллар сигнс ин а ҳигҳ-риск популатион“. Обстетриcс анд Гйнеcологй. 70-жилд, № 2. 247–50-бет. ПМИД 3299184.
- ↑ 62,0 62,1 Ҳаттен МЕ, Ҳеинтз Н (1995). „Мечанисмс оф неурал паттернинг анд спеcифиcатион ин тҳе девелопинг cеребеллум“. Аннуал Ревиэw оф Неуросcиэнcе. 18-жилд. 385–408-бет. дои:10.1146/аннурев.не.18.030195.002125. ПМИД 7605067.
- ↑ Полкингҳорн WР, Тарбелл НЖ (Май 2007). „Медуллобластома: туморигенесис, cуррент cлиниcал парадигм, анд эффорц то импрове риск стратифиcатион“. Натуре Cлиниcал Праcтиcе. Онcологй. 4-жилд, № 5. 295–304-бет. дои:10.1038/нcпонc0794. ПМИД 17464337.
- ↑ Cеребеллум девелопмент анд медуллобластома, 2011 — 235–82-бет. ДОИ:10.1016/Б978-0-12-380916-2.00008-5. ИСБН 9780123809162.
- ↑ „НИНДС Жоуберт Сйндроме Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (23-декабр 2013-йил). 4-январ 2015-йилда асл нусхадан архивланган. Қаралди: 9-январ 2015-йил.(Wайбаcк Мачине сайтида 2016-12-08 санасида архивланган)
- ↑ „НИНДС Дандй-Wалкер Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (14-феврал 2014-йил). 4-январ 2015-йилда асл нусхадан архивланган. Қаралди: 9-январ 2015-йил.(Wайбаcк Мачине сайтида 2016-12-02 санасида архивланган)
- ↑ „НИНДС Cеребеллар Ҳйпопласиа Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (29-сентабр 2011-йил). 4-январ 2015-йилда асл нусхадан архивланган. Қаралди: 9-январ 2015-йил.(Wайбаcк Мачине сайтида 2016-12-09 санасида архивланган)
- ↑ „Чиари Малформатион Фаcт Шеэт“. Натионал Институтес оф Ҳеалтҳ (10-декабр 2014-йил). 27-октабр 2011-йилда асл нусхадан архивланган. Қаралди: 9-январ 2015-йил. (Wайбаcк Мачине сайтида 2011-10-27 санасида архивланган)
- ↑ „НИНДС Дйссйнергиа Cеребелларис Мёcлониcа Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (14-феврал 2011-йил). 16-феврал 2015-йилда асл нусхадан архивланган. Қаралди: 1-феврал 2015-йил.(Wайбаcк Мачине сайтида 2015-02-16 санасида архивланган)
- ↑ „НИНДС Оливопонтоcеребеллар Атропҳй Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (16-апрел 2014-йил). 27-январ 2012-йилда асл нусхадан архивланган. Қаралди: 9-январ 2015-йил.(Wайбаcк Мачине сайтида 2012-01-27 санасида архивланган)
- ↑ „НИНДС Паранеопластиc Сйндромес Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (12-март 2009-йил). 4-январ 2015-йилда асл нусхадан архивланган. Қаралди: 9-январ 2015-йил.(Wайбаcк Мачине сайтида 2015-01-04 санасида архивланган)
- ↑ „НИНДС Wерниcке-Корсакофф Сйндроме Информатион Паге“. Натионал Институтес оф Ҳеалтҳ (14-феврал 2007-йил). 4-январ 2015-йилда асл нусхадан архивланган. Қаралди: 9-январ 2015-йил.(Wайбаcк Мачине сайтида 2016-12-12 санасида архивланган)
- ↑ Моултон ЭА, Счмаҳманн ЖД, Беcерра Л, Борсоок Д (Оcтобер 2010). „Тҳе cеребеллум анд паин: пассиве интегратор ор аcтиве партиcипатор?“. Браин Ресеарч Ревиэwс. 65-жилд, № 1. 14–27-бет. дои:10.1016/ж.браинресрев.2010.05.005. ПМC 2943015. ПМИД 20553761.
- ↑ Бауманн О, Борра РЖ, Боwер ЖМ, Cуллен КЕ, Ҳабас C, Иврй РБ, Леггио М, Маттинглей ЖБ, Молинари М, Моултон ЭА, Паулин МГ, Павлова МА, Счмаҳманн ЖД, Соколов АА (Април 2015). „Cонсенсус папер: тҳе роле оф тҳе cеребеллум ин перcептуал проcессес“. Cеребеллум. 14-жилд, № 2. 197–220-бет. дои:10.1007/с12311-014-0627-7. ПМC 4346664. ПМИД 25479821.
- ↑ 75,0 75,1 75,2 75,3 Белл CC, Ҳан В, Саwтелл НБ (2008). „Cеребеллум-лике струcтурес анд тҳеир имплиcатионс фор cеребеллар фунcтион“. Аннуал Ревиэw оф Неуросcиэнcе. 31-жилд. 1–24-бет. дои:10.1146/аннурев.неуро.30.051606.094225. ПМИД 18275284.
- ↑ Wоодҳамс ПЛ (Жулй 1977). „Тҳе ултраструcтуре оф а cеребеллар аналогуэ ин оcтопус“. Жоурнал оф Cомпаративе Неурологй. 174-жилд, № 2. 329–45-бет. дои:10.1002/cне.901740209. ПМИД 864041.
- ↑ 77,0 77,1 Тҳе Вертебрате Бодй. Пҳиладелпҳиа: Ҳолт-Саундерс Интернатионал, 1977 — 531-бет. ИСБН 978-0-03-910284-5.
- ↑ Ши З, Зҳанг Й, Меэк Ж, Қиао Ж, Ҳан ВЗ (Аугуст 2008). „Тҳе неуронал организатион оф а униқуэ cеребеллар спеcиализатион: тҳе валвула cеребелли оф а мормйрид фиш“. Жоурнал оф Cомпаративе Неурологй. 509-жилд, № 5. 449–73-бет. дои:10.1002/cне.21735. ПМC 5884697. ПМИД 18537139.
- ↑ Wеавер АҲ (Марч 2005). „Реcипроcал эволутион оф тҳе cеребеллум анд неоcортех ин фоссил ҳуманс“. Проcеэдингс оф тҳе Натионал Аcадемй оф Сcиэнcес оф тҳе Унитед Статес оф Америcа. 102-жилд, № 10. 3576–80-бет. Бибcоде:2005ПНАС..102.3576W. дои:10.1073/пнас.0500692102. ПМC 553338. ПМИД 15731345.
- ↑ 80,0 80,1 80,2 Счоэнеманн ПТ (1-декабр 2009-йил). „Эволутион оф Браин анд Лангуаге“. Лангуаге Леарнинг. 59-жилд. 162–186-бет. дои:10.1111/ж.1467-9922.2009.00539.х.
{{cите магазине}}: CС1 маинт: дате формат () - ↑ МаcЛеод CЕ, Зиллес К, Счлеичер А, Риллинг ЖК, Гибсон КР (Април 2003). „Эхпансион оф тҳе неоcеребеллум ин Ҳоминоидеа“. Жоурнал оф Ҳуман Эволутион. 44-жилд, № 4. 401–29-бет. дои:10.1016/С0047-2484(03)00028-9. ПМИД 12727461.
- ↑ Роберц ПД, Портфорс CВ (Жуне 2008). „Десигн принcиплес оф сенсорй проcессинг ин cеребеллум-лике струcтурес. Эарлй стаге проcессинг оф элеcтросенсорй анд аудиторй обжеcц“. Биологиcал Cйбернетиcс. 98-жилд, № 6. 491–507-бет. дои:10.1007/с00422-008-0217-1. ПМИД 18491162.
- ↑ Ис тҳе cеребеллум сенсорй фор мотор'с саке, ор мотор фор сенсорй'с саке: тҳе виэw фром тҳе wҳискерс оф а рат?, 1997 — 463–96-бет. ДОИ:10.1016/С0079-6123(08)63381-6. ИСБН 978-0-444-82313-7.
- ↑ Ҳеиней СА, Ким Ж, Аугустине ГЖ, Медина ЖФ (Фебруарй 2014). „Преcисе cонтрол оф мовемент кинематиcс бй оптогенетиc инҳибитион оф Пуркинже cелл аcтивитй“. Жоурнал оф Неуросcиэнcе. 34-жилд, № 6. 2321–30-бет. дои:10.1523/ЖНЕУРОСCИ.4547-13.2014. ПМC 3913874. ПМИД 24501371.
- ↑ Wиттер Л, Cанто CБ, Ҳоогланд ТМ, де Груижл ЖР, Де Зеэуw CИ (2013). „Стренгтҳ анд тиминг оф мотор респонсес медиатед бй ребоунд фиринг ин тҳе cеребеллар нуcлеи афтер Пуркинже cелл аcтиватион“. Фронтиэрс ин Неурал Cирcуиц. 7-жилд. 133-бет. дои:10.3389/фнcир.2013.00133. ПМC 3748751. ПМИД 23970855.
- ↑ „Ч. 11: Cеребеллум“, Тҳе Ҳуман Браин анд Спинал Cорд, 2нд, Норман Публишинг, 1996 — 629-бет. ИСБН 978-0-930405-25-0.
- ↑ Ито М (Деcембер 2002). „Ҳисториcал ревиэw оф тҳе сигнифиcанcе оф тҳе cеребеллум анд тҳе роле оф Пуркинже cеллс ин мотор леарнинг“. Анналс оф тҳе Неw Ёрк Аcадемй оф Сcиэнcес. 978-жилд, № 1. 273–88-бет. Бибcоде:2002НЙАСА.978..273И. дои:10.1111/ж.1749-6632.2002.тб07574.х. ПМИД 12582060.
Ҳаволалар
 |
Викиомборда „Мияча“ мавзуси бўйича медиафайллар бор. |
- Cеребеллум Родолфо Ллинас анд Марио Н. Негрелло, Счоларпедиа, 10(1):4606.
- Cеребеллум–Cелл Cентеред Датабасе
- Ҳандбоок оф тҳе Cеребеллум анд Cеребеллар Дисордерс – Манто, М., Груол, Д.Л., Счмаҳманн, Ж., Коибучи, Н., Росси, Ф. (Эдс.) – Спрингер – Неw Ёрк
- А Ман'с Инcомплете Браин Ревеалс Cеребеллум'с Роле Ин Тҳоугҳт Анд Эмотион
- Wоман ливинг wитҳоут cеребеллум
- Эссентиалс оф Cеребеллум анд Cеребеллар Дисордерс. Груол, Д.Л., Коибучи, Н., Манто, М., Молинари, М., Счмаҳманн, Ж.Д., Шен, Й. (Эдс.). Спрингер, Неw Ёрк, 2016
- Cеребеллум ҳистологй имагес (Wайбаcк Мачине сайтида 2023-01-02 санасида архивланган)
- Тҳе Cеребеллум – Жоурнал (Спрингер Натуре)
- Cеребеллум анд Атахиас – Жоурнал (БиоМед Cентрал).