Oraliq formalar

Оралиқ формалар (инглизча: Транситионал фоссил) — аждод гуруҳи ва ундан келиб чиққан авлод гуруҳи учун умумий бо'лган белгиларни о'зида намоён этувчи ҳар қандай ҳаёт шаклининг тошқотган қолдиқлари.[1] Бу, айниқса, авлод гуруҳи аждод гуруҳидан макроанатомия (гросс анатомй) ва яшаш тарзи бо'йича кескин фарқ қилганда муҳим аҳамиятга эга. Ушбу қолдиқлар таксономик бо'линишлар о'згарувчанлик континуумига нисбатан кейинчалик киритилган инсоний тушунчалар эканлигини эслатиб туради. Тошқотган қолдиқлар йилномаси то'лиқ эмаслиги сабабли, оралиқ форманинг ажралиш нуқтасига қанчалик яқин эканлигини аниқ билишнинг иложи ё'қ. Шу сабабли, оралиқ формалар кейинги гуруҳларнинг бевосита аждодлари деб тахмин қилинмаслиги керак, гарчи улар ко'пинча шундай аждодлар учун модел сифатида ишлатилса-да.[2]
1859-йилда Чарлз Дарвиннинг «Турларнинг келиб чиқиши» (Он тҳе Оригин оф Спеcиэс) асари илк бор нашр этилганда, тошқотган қолдиқлар йилномаси етарлича о'рганилмаган эди. Дарвин оралиқ формаларнинг етишмаслигини «назариямга қарши билдирилиши мумкин бо'лган энг аниқ ва жиддий э'тироз» деб та'рифлаган, аммо буни геологик йилноманинг о'та номукаммаллиги билан изоҳлаган.[3] У о'ша пайтда мавжуд то'пламлар чекланганлигини қайд этган, бироқ мавжуд ма'лумотлар табиий танланиш орқали модификациялашган ҳолда ирсийланиш назариясига мос келувчи қонуниятларни ко'рсатишини та'кидлаган.[4] Дарҳақиқат, орадан бор-ё'г'и икки йил о'тиб, 1861-йилда Арчаэоптерйх кашф этилди ва у қадимги қушсимон бо'лмаган динозаврлар ҳамда қушлар о'ртасидаги классик оралиқ форма бо'либ қолди. О'шандан бери ко'плаб бошқа оралиқ формалар топилди ва ҳозирда барча умуртқали ҳайвонлар синфлари о'заро қандай бог'лиқлиги то'г'рисида етарли далиллар, жумладан, ко'плаб оралиқ формалар мавжуд.[5] Синф даражасидаги о'тишларга қуйидагилар мисол бо'лади: тетраподлар ва балиқлар, қушлар ва динозаврлар, шунингдек, сутемизувчиларнинг «сутемизувчисимон судралиб юрувчилар»дан келиб чиқиши.
«Етишмаётган ҳалқа» атамаси оммабоп адабиётларда одам эволюцияси бо'йича ҳоминидлар эволюцион йилномасидаги бо'шлиқни ифодалаш учун кенг қо'лланилган. У ко'пинча ҳар қандай янги топилган оралиқ формага нисбатан ишлатилади. Бироқ, олимлар ушбу атамадан фойдаланмайдилар, чунки у табиатга бо'лган эволюциядан олдинги қарашларга ишора қилади.
Эволюцион ва филогенетик таксономия
Филогенетик номенклатурадаги о'тиш даврлари

ХХ асрнинг катта қисмида ҳукмрон бо'лган ва ҳалигача ихтисослашмаган дарсликларда қо'лланиладиган эволюцион таксономияда морфологик о'хшашликка асосланган таксонлар ко'пинча бир-биридан ажралиб чиқувчи ва эволюцион дарахтларни ҳосил қилувчи «пуфакчалар» ёки «дуклар» сифатида тасвирланади.[6] Оралиқ формалар анатомия нуқтаи назаридан турли гуруҳлар орасида жойлашган деб қаралади ва улар янги тармоқланган клада (cладе) ичидаги ва ташқарисидаги хусусиятлар аралашмасига эга бо'лади.[7]
1990-йилларда кладистика (cладистиcс) қарор топиши билан, о'заро муносабатлар эволюцион насл-насабларнинг тармоқланишини таёқчасимон шаклларда ифодаловчи кладограммаларда ко'рсатиладиган бо'лди. «Табиий» ёки «монофилетик» деб аталувчи турли гуруҳлар ичма-ич жойлашган бирликларни ҳосил қилади ва фақат уларга филогенетик номлар берилади. Ан'анавий таснифда тетраподлар ва балиқлар икки хил гуруҳ сифатида ко'рилса-да, филогенетик жиҳатдан тетраподлар балиқларнинг бир тармог'и ҳисобланади. Шу тариқа, кладистикада о'рнатилган гуруҳлар о'ртасида энди о'тиш даври мавжуд эмас ва «оралиқ формалар» атамаси ното'г'ри ном ҳисобланади. Табақаланиш гуруҳлар ичида содир бо'лади ва кладограммада тармоқлар ко'ринишида ифодаланади.[8]
Кладистик контекстда оралиқ организмларни ма'лум бир тармоқнинг дастлабки намуналари сифатида ко'риш мумкин, бунда ушбу тармоқдаги аввал ма'лум бо'лган авлодларга хос барча белгилар ҳали то'лиқ шаклланмаган бо'лади.[9] Гуруҳнинг бундай дастлабки вакиллари, қазилма организм қиз кладага тегишли ёки ё'қлигига қараб, одатда «базал таксонлар» ёки «қардош таксонлар» деб аталади.[10][8]
Оралиқ ва аждод шакллари
Икки хил таксономик гуруҳ о'ртасидаги оралиқ форма улардан бири ёки иккаласининг бевосита аждоди бо'лиши керак деган тушунча чалкашлик манбаи ҳисобланади. Эволюцион таксономиянинг мақсадларидан бири бошқа таксонларга аждод бо'лган таксонларни аниқлаш эканлиги бу қийинчиликни янада кучайтиради. Бироқ эволюция — нарвонсимон прогрессияни эмас, балки қардош турларнинг мураккаб бутасимон шаклини ҳосил қилувчи тармоқланиш жараёни эканлиги ҳамда тошқотган қолдиқлар йилномаси то'лиқ эмаслиги сабабли, қолдиқлар орасидаги ҳар қандай муайян шакл бошқасининг бевосита аждоди бо'лиши эҳтимоли жуда кам. Кладистика бир таксономик гуруҳнинг бошқасига аждод эканлиги тушунчасига камроқ ург'у беради ва унинг о'рнига бошқа гуруҳларга қараганда бир-бири билан яқинроқ умумий аждодга эга бо'лган қардош таксонларни аниқлашга э'тибор қаратади. Тошқотган қолдиқлар йилномаси ба'зи денгиз планктони микрофоссиллари каби камдан-кам учрайдиган ҳолатларда етарлича то'лиқ сақланган бо'либ, ма'лум қолдиқлар ҳақиқатан ҳам кейинги даврда яшаган турли турлар популяциясининг аждоди бо'лганлигини ишонч билан айтиш имконини беради.[11] Аммо, умуман олганда, оралиқ формалар ҳақиқий аждодлар бо'лишдан ко'ра, турли таксонларнинг ҳақиқий умумий аждодларига хос оралиқ анатомик хусусиятларни о'зида намоён этувчи организмлар деб ҳисобланади.[12]
Машҳур мисоллар
Арчаэоптерйх

Арчаэоптерйх — қушларга яқин қариндош бо'лган теропод динозаврлар уруг'и. ХИХ аср охиридан бошлаб палеонтологлар томонидан энг қадимги ма'лум қуш сифатида қабул қилинган ва оммабоп манбаларда шундай та'рифланган бо'лса-да, 2011-йилги тадқиқот ушбу баҳога шубҳа билан қаради ва унинг о'рнига у қушларнинг келиб чиқишига яқин қариндош бо'лган авиалан бо'лмаган динозавр эканлигини тахмин қилди.[13]
У тахминан 150 миллион йил олдин Со'нгги Юра даврида, ҳозирги Германия жанубида яшаган. О'ша пайтда Европа саёз, илиқ тропик денгиздаги архипелаг бо'либ, экваторга ҳозиргидан анча яқинроқ жойлашган эди. Шакли жиҳатидан Европа заг'изг'онига (Эуропеан магпиэ) о'хшаш бо'лган ва энг йирик намуналари қузг'ун катталигига етган[14] Арчаэоптерйх узунлиги тахминан 0,5 метрга етиши мумкин бо'лган. Кичик о'лчами, кенг қанотлари ва тахмин қилинган учиш ёки сарпилаш қобилиятига қарамай, Арчаэоптерйх замонавий қушлардан ко'ра бошқа кичик Мезозой динозаврларига ко'проқ о'хшашликларга эга. Хусусан, у дейнонихозаврлар (дромеозаврлар ва троодонтидлар) билан қуйидаги умумий белгиларга эга: о'ткир тишли жаг'лар, уч бармоқли тирноқли панжалар, узун суякли дум, гиперекстензив иккинчи бармоқ («о'лдирувчи тирноқ»), патлар (гомоётермияни тахмин қилишга асос бо'лади) ва турли скелет хусусиятлари.[15] Бу хусусиятлар Арчаэоптерйхни динозаврлар ва қушлар о'ртасидаги оралиқ форма учун яққол номзод қилиб ко'рсатади[16] ҳамда уни динозаврлар ва қушларнинг келиб чиқишини о'рганишда муҳим аҳамиятга эга қилади.
Биринчи то'лиқ намуна 1861-йилда э'лон қилинган бо'либ, шундан бери яна о'нта Арчаэоптерйх қолдиг'и топилган. О'н битта ма'лум қолдиқнинг аксарияти патларнинг изларини о'з ичига олади — бу бундай тузилмаларнинг энг қадимги то'г'ридан-то'г'ри далилларидан биридир. Бундан ташқари, ушбу патлар учиш патларининг ривожланган шаклига эга эканлиги сабабли, Арчаэоптерйх қолдиқлари патларнинг Со'нгги Юра давридан олдин ривожлана бошлаганига далил бо'лади.[17]
Аустралопитҳеcус афаренсис

Аустралопитҳеcус афаренсис ҳоминиди замонавий икки оёқда юрувчи одамлар ва уларнинг то'рт оёқда юрувчи одамсимон маймун аждодлари о'ртасидаги эволюцион о'тишни ифодалайди. А. афаренсис скелетининг бир қатор белгилари бипедализмни (икки оёқда юриш) кучли акс эттиради. Шу сабабли, ба'зи тадқиқотчилар бипедаллик А. афаренсисдан анча олдин ривожланганлигини тахмин қилишган.[18] Умумий анатомияда тос суяги маймунникидан ко'ра ко'проқ одамникига о'хшайди. Янақ қанотлари (илиаc бладес) қисқа ва кенг, думг'аза кенг ва чаноқ бо'г'имининг то'г'ридан-то'г'ри орқасида жойлашган ҳамда тизза ёзувчи мушаклари (кнеэ эхтенсорс) учун кучли бирикиш нуқтаси мавжудлиги аниқ далиллардир. Бу эса тик қоматни англатади.[18]:122
Гарчи тос суяги бутунлай одамникига о'хшамасада (сезиларли даражада кенг ёки ёйилган, янақ қанотлари латерал ё'налган), бу хусусиятлар бипедализмга мослашиш учун тубдан о'згарган тузилмани ко'рсатади. Сон суяги чаноқдан тизза томон бурчак остида ё'налган. Бу хусусият оёқнинг тана о'рта чизиг'ига яқинроқ тушишига имкон беради ва одатий бипедал ҳаракатланишдан далолат беради. Ҳозирги замон одамлари, орангутанлар ва о'ргимчаксимон маймунлар (спидер монкейс) айни шу хусусиятга эга. Оёқ панжалари яқинлаштирилган (аддуcтед) бош бармоқларга эга бо'либ, бу орқа оёқлар билан шохларни ушлашни имконсиз бо'лмаса ҳам, қийинлаштиради. Ҳаракатланишдан ташқари, А. афаренсис замонавий шимпанзега[19] (одамларнинг энг яқин тирик қариндоши) қараганда бироз каттароқ мияга эга бо'лган ва тишлари маймунникидан ко'ра ко'проқ одамникига о'хшаш эди.[20]
Пакисетидлар, Амбулоcетус


Китасимонлар (китлар, делфинлар ва денгиз чо'чқалари) қуруқликдаги сутемизувчилардан келиб чиққан денгиз сутемизувчиларидир. Пакисетидлар (Пакиcетидаэ) энг қадимги китлар ҳисобланган, туёқли сутемизувчиларнинг қирилиб кетган оиласи бо'либ, уларнинг энг яқин қардош гуруҳи Раоэллидаэ оиласига мансуб Индоҳюсдир.[21][22] Улар Эрта Эоцен даврида, тахминан 53 миллион йил олдин яшаган. Уларнинг тошқотган қолдиқлари биринчи марта 1979-йилда Шимолий Покистонда, собиқ Тетис денгизи қирг'оқларидан унчалик узоқ бо'лмаган дарё бо'йида топилган.[23][паге неэдед] Пакисетидлар ко'пчилик қуруқлик сутемизувчилари каби ног'ора пардаларга таянмасдан, балки кучайтирилган суяк о'тказувчанлигидан фойдаланган ҳолда сув остида эшита олганлар. Ушбу тузилиш сув остида товуш ё'налишини аниқлаш имконини бермайди.[24]
Тахминан 49 миллион йил олдин яшаган Амбулоcетус натанс 1994-йилда Покистонда топилган. У эҳтимол амфибия бо'лган ва тимсоҳга о'хшаган.[25] Эоцен даврида амбулосетидлар Шимолий Покистондаги Тетис океанининг қо'лтиқлари ва эстуарийларида яшаган.[26] Амбулосетидларнинг қолдиқлари ҳар доим ко'плаб денгиз о'симликлари қолдиқлари ва литорал молюскалар билан биргаликда қирг'оққа яқин саёз денгиз ётқизиқларида учрайди.[26] Гарчи улар фақат денгиз ётқизиқларида топилган бо'лса-да, уларнинг кислород изотопи ко'рсаткичлари шуни ко'рсатадики, улар турли даражадаги шо'рланишга эга сув исте'мол қилганлар. Хусусан, ба'зи намуналарда тишлари фосиллашган пайтда денгиз сувини исте'мол қилганлик белгилари, бошқаларида эса чучук сув исте'мол қилганлик белгилари умуман ё'қ. Ма'лумки, амбулосетидлар туз консентрациясининг кенг доирасига бардош бера олган.[27] Уларнинг рациони, эҳтимол, сув ичиш учун келган қуруқлик ҳайвонлари ёки дарёда яшовчи чучук сув организмларини о'з ичига олган.[26] Шу тариқа, амбулосетидлар китасимонлар аждодларининг чучук сув ва денгиз муҳити о'ртасидаги о'тиш босқичини ифодалайди.
Тиктаалик


Тиктаалик — Со'нгги Девон даврига мансуб, қирилиб кетган саркоптеригиялар (панжақанотли балиқлар) уруг'и бо'либ, тетраподларга (то'рт оёқли ҳайвонлар) хос ко'плаб хусусиятларга эга.[28] У о'з даврининг кислородга бой бо'лмаган саёз сув ҳавзаларига мослашишни ривожлантирган ва кейинчалик тетраподлар эволюциясига олиб келган қадимги саркоптеригияларнинг бир неча тармоқларидан биридир.[29] Яхши сақланган қолдиқлари 2004-йилда Канаданинг Нунавут ҳудудидаги Элсмир оролида топилган.[30]
Тиктаалик тахминан 375 миллион йил олдин яшаган. Палеонтологлар уни 380 миллион йиллик қолдиқлардан ма'лум бо'лган Пандеричтҳйс каби тетрапод бо'лмаган умуртқалилар ва 365 миллион йил олдин яшаган Аcантҳостега ҳамда Ичтҳёстега каби эрта тетраподлар о'ртасидаги о'тиш даври вакили деб ҳисоблайдилар. Ибтидоий балиқ ва ҳосила тетрапод хусусиятларининг аралашуви унинг кашфиётчиларидан бири Нил Шубинни Тиктааликни «балиқ-тетрапод» (фишапод) деб та'рифлашга ундади.[31][32] Аввалги ко'плаб балиқсимон оралиқ формалардан фарқли о'лароқ, Тиктааликнинг «сузгичлари» асосий билак суяклари ва бармоқларни эслатувчи оддий нурларга эга эди. Улар ог'ирликни ко'тара олган бо'лиши мумкин. Гарчи балиқларга хос жабра, тангача ва сузгичларга эга бо'лса-да, барча замонавий тетраподлар сингари унинг қовург'а суяклари, алоҳида ко'крак камари бо'лган ҳаракатчан бо'йни ва о'пкаси мавжуд эди.[28] Бироқ, Боисверт ва бошқалар томонидан 2008-йилда чоп этилган мақолада та'кидланишича, Пандеричтҳйс о'зининг ко'проқ ривожланган дистал қисми туфайли Тиктааликка қараганда тетраподларга яқинроқ бо'лиши мумкин. Тиктаалик эса конвергент эволюция орқали тетраподларга о'хшашликни мустақил равишда ривожлантирган бо'лиши эҳтимоли бор.[33]
2010-йил январ ойида Натуре журналида хабар қилинган Полшада топилган тетрапод излари энг қадимги ма'лум элпистостегидлардан (Тиктаалик шулар жумласидандир) 10 миллион йил олдинги даврга «ишончли саналанган».[34] Бу шуни англатадики, тахминан 400 миллион йил олдин ривожланган хусусиятларга эга Тиктаалик каби ҳайвонлар «бевосита оралиқ формалар эмас, балки кечгача сақланиб қолган реликтлар бо'лган ва улар қуруқлик умуртқалиларининг энг эрта тарихи ҳақида қанчалик кам билишимизни ко'рсатади».[35]
Ампҳистиум
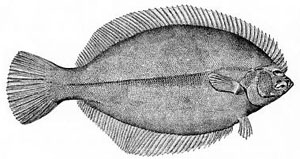

Камбаласимонлар (Плеуронеcтиформес) — шу'лақанотли балиқлар (Аcтиноптерйгии) туркуми. Замонавий камбаласимонларнинг энг яққол хусусияти уларнинг асимметрияси бо'либ, вояга етган балиқларда иккала ко'з бошнинг бир томонида жойлашади. Ба'зи оилаларда ко'злар ҳар доим о'нг томонда (о'нг ко'зли камбалалар), бошқаларида эса ҳар доим чап томонда (чап ко'зли камбалалар) бо'лади. Ибтидоий тиканли камбалалар (спинй турбоц) тенг миқдордаги о'нг ва чап ко'зли индивидларни о'з ичига олади ва одатда бошқа оилаларга қараганда камроқ асимметрикдир. Туркумнинг бошқа ажралиб турувчи хусусиятлари — бо'ртиб чиққан ко'злар (бу ҳам денгиз тубида (бентос) яшашга мослашишдир) ва орқа сузгичнинг бош қисмигача чо'зилишидир.[36]
Ампҳистиум — камбаласимонларнинг эрта қариндоши ва оралиқ форма сифатида аниқланган, ёши 50 миллион йилга тенг тошқотган балиқ қолдиг'и.[37] Ампҳистиумда умуртқалиларга хос типик симметрик бошдан о'тиш жараёни тугалланмаган бо'либ, битта ко'з бошнинг юқори марказига яқин жойлашган.[38] Палеонтологлар «о'згаришлар тадқиқотчилар бир вақтлар ишонишга мажбур бо'лганидек то'сатдан эмас, балки табиий танланиш орқали эволюцияга мос равишда, аста-секин содир бо'лган» деган хулосага келишди.[37]
Ампҳистиум Италиядаги Лютет ётқизиқларининг Монте-Болка лагерштеттесидан ма'лум бо'лган ко'плаб тошқотган балиқ турлари қаторига киради. Франсиянинг бироз олдинроқ даврга оид қатламларидан топилган Ҳетеронеcтес унга қардош ва жуда о'хшаш қолдиқ ҳисобланади.[38]
Рунcариа

Белгияда уруг'ли о'симликларнинг (Сперматопҳйте) О'рта Девон даврига оид о'тмишдоши аниқланди, бу энг қадимги уруг'ли о'симликлардан тахминан 20 миллион йил олдин пайдо бо'лган. Кичик ва радиал симметрияга эга Рунcариа — бу купула (cупуле) билан о'ралган, интегументли (қопламали) мегаспорангийдир. Мегаспорангийда ко'п бо'лакли интегумент (қоплама) устидан чиқиб турувчи очилмаган дистал о'симта мавжуд. Ушбу о'симта анемофил чангланишда (шамол ёрдамида) иштирок этган деб тахмин қилинади. Рунcариа уруг'нинг шаклланишига олиб келадиган белгилар кетма-кетлигини янгича ёритиб беради. Унда қаттиқ уруг' қобиг'и ва чангни уруг'га ё'налтириш тизимидан ташқари, уруг'ли о'симликларнинг барча хусусиятлари мавжуд.[39]
Тошқотган қолдиқлар йилномаси
Оралиқ формаларнинг барчаси ҳам тошқотган қолдиқлар йилномасида акс этмайди, чунки бу йилнома то'лиқ эмас. Организмлар энг қулай шароитларда ҳам камдан-кам ҳолларда қолдиқ сифатида сақланиб қолади ва бундай қолдиқларнинг оз қисмигина топилган. Палеонтолог Доналд Протеро буни тошқотган қолдиқлар йилномаси орқали ма'лум бо'лган турлар сони ҳозирги ма'лум тирик турлар сонининг 5 фоизидан камлигини та'кидлаб, қолдиқлар орқали ма'лум турлар ер юзида яшаган барча турларнинг 1 фоизидан ҳам камрог'ини ташкил этиши кераклигини ко'рсатиб о'тган.[40]
Биологик тузилманинг тошга айланиши учун талаб этиладиган махсус ва ноёб шароитлар туфайли, мантиқ шуни ко'рсатадики, ма'лум бо'лган тошқотган қолдиқлар мавжуд бо'лган барча ҳаёт шаклларининг кичик бир фоизини ташкил этади ва ҳар бир топилма эволюциянинг фақат бир лаҳзасини ифодалайди. О'тиш жараёнининг о'зи фақат оралиқ қолдиқлар билан тасвирланиши ва тасдиқланиши мумкин, бироқ улар ҳеч қачон аниқ ажралиб турадиган шакллар о'ртасидаги аниқ о'рта нуқтани намойиш этмайди.[41]
Тошқотган қолдиқлар йилномаси жуда нотекис ва, камдан-кам истиснолардан ташқари, асосан қаттиқ қисмларга эга организмларга ё'налтирилган бо'либ, юмшоқ танали организмларнинг ко'пчилик гуруҳлари деярли сақланиб қолмаган.[40] Яхши сақланиб қолган тошқотган қолдиқлар йилномасига, жумладан ан'анавий гуруҳлар о'ртасидаги ко'плаб оралиқ формаларга эга гуруҳларга умуртқалилар, нинатерилилар, брахиоподалар ва бо'г'имоёқлиларнинг ба'зи гуруҳлари киради.[42]
Тарихи
Дарвиндан кейинги давр

Ҳайвон ва о'симлик турлари о'згармас эмаслиги, балки вақт о'тиши билан о'згариб туриши ҳақидаги г'оя ХВИИИ асрдаёқ илгари сурилган эди.[43] Дарвиннинг 1859-йилда нашр этилган «Турларнинг келиб чиқиши» асари бунга мустаҳкам илмий асос берди. Бироқ, Дарвиннинг о'зи та'кидлаганидек, асарининг заиф томони палеонтологик далилларнинг етишмаслиги эди. Табиий танланиш уруг'лар ва оилалар ичида кузатиладиган о'згарувчанликни келтириб чиқаришини тасаввур қилиш осон бо'лса-да, юқори тоифалар о'ртасидаги о'згаришларни тасаввур қилиш қийинроқ эди. Дарвин асари нашр этилгандан бор-ё'г'и икки йил о'тиб, 1861-йилда Арчаэоптерйхнинг Лондон намунаси топилиши кутилмаган воқеа бо'лди. Бу биринчи марта юқори даражада ривожланган қушлар синфи ва ко'проқ базал хусусиятга эга судралиб юрувчилар о'ртасидаги бог'лиқликни тақдим этди.[44] Палеонтолог Хю Фалконер Дарвинга ёзган хатида шундай деган:
Агар Золнҳофен карерларига — олий фармон билан — Дарвин услубидаги г'алати мавжудотни чиқариш топширилганда эди, у бу буйруқни Арчаэоптерйхдан ко'ра а'лороқ бажара олмасди.[45]
Шундай қилиб, Арчаэоптерйх каби оралиқ формалар нафақат Дарвин назариясини тасдиқловчи далил, балки о'з ҳолича эволюция рамзлари сифатида ко'рила бошланди.[46] Масалан, 1904-йилдаги Швециянинг Нордиск фамилжебок энсиклопедик луг'атида Арчаэоптерйх қолдиг'ининг ното'г'ри реконструксияси (расмга қаранг) келтирилган ва у «этт аф де бетйделсефулласте палеонтологиска фйнд, сом нåгонсин гжорц» («тарихдаги энг муҳим палеонтологик топилмалардан бири») деб та'рифланган.[47]
О'симликларнинг пайдо бо'лиши
Оралиқ формалар нафақат ҳайвонларга, балки о'симликларга ҳам тегишли. ХХ аср бошларида о'симликлар бо'лимларининг хариталаниши кучайиши билан найсимон о'симликларнинг (васcулар планц) аждодини излаш бошланди. 1917-йилда Роберт Кидстон ва Уилям Генри Ланг Шотландиянинг Абердиншир графлигидаги Райни чертларида (Рҳйниэ черт) о'та ибтидоий о'симлик қолдиқларини топдилар ва уни Рҳйниа деб номладилар.[48]
Рҳйниа о'симлиги кичик ва таёқчасимон бо'либ, баргсиз, дихотомик (икки айри) тармоқланган пояларга эга эди ва ҳар бир поя учи спорангий билан тугаган. Бу оддий шакл ё'синларнинг спорофитини эслатади. Ма'лум бо'лишича, Рҳйниа насл галланишига (алтернатион оф генератионс) эга бо'либ, унга мос келувчи гаметофит баландлиги атиги бир неча миллиметр бо'лган кичик поялар то'плами шаклида бо'лган.[49] Шу тариқа, Рҳйниа ё'синлар ва қирққулоқлар ҳамда плаунсимонлар (cлубмоссес) каби эрта найсимон о'симликлар о'ртасида оралиқ о'ринни эгаллайди. Ё'синларга о'хшаш гаметофитлар гиламидан о'сиб чиқувчи каттароқ Рҳйниа спорофитлари худди оддий плаунсимонлар каби о'сган ва о'симликни субстратга маҳкамловчи ризоидлар чиқариб, горизонтал о'сувчи поялар ёрдамида тарқалган. Ё'синларга хос ва найсимон о'симликларга хос белгиларнинг г'айриоддий аралашуви ҳамда о'симликнинг о'та содда тузилиши ботаника фанида катта аҳамиятга эга бо'лди.[50]
Етишмаётган ҳалқалар

Барча тирик мавжудотларнинг қандайдир трансмутация жараёни орқали бог'ланганлиги ҳақидаги г'оя Дарвиннинг эволюция назариясидан олдин пайдо бо'лган. Жан-Батист Ламарк ҳаёт доимий равишда энг оддий мавжудотлар шаклида пайдо бо'лишини ва қуйи шаклларнинг прогрессив серияси орқали мураккаблик ва мукаммалликка интилишини (я'ни инсонларга) тасаввур қилган.[51] Унинг фикрича, қуйи ҳайвонлар шунчаки эволюцион саҳнага янги келганлар эди.[52]
«Турларнинг келиб чиқиши» асаридан со'нг, «қуйи ҳайвонлар» эволюциянинг олдинги босқичларини ифодалайди деган г'оя сақланиб қолди, буни Эрнст Геккелнинг инсон шажараси чизмасида ко'риш мумкин.[53] О'ша пайтда умуртқалилар о'зига хос эволюцион кетма-кетликни ташкил этади деб қаралган бо'лса-да, турли синфлар алоҳида ажралиб турарди ва топилмаган оралиқ шакллар «етишмаётган ҳалқалар» деб аталарди.
Бу атама илмий контекстда биринчи марта Чарлз Лаелл томонидан «Геология асослари» (Элеменц оф Геологй) китобининг учинчи нашрида (1851) геологик устуннинг етишмаётган қисмларига нисбатан ишлатилган, аммо унинг ҳозирги ма'носи 1863-йилдаги «Одамнинг қадимийлиги ҳақида геологик далиллар» (Геологиcал Эвиденcес оф тҳе Антиқуитй оф Ман) китобининг хи-саҳифасида пайдо бо'лиши билан оммалашди. О'ша пайтда со'нгги музлик даврининг охири инсониятнинг илк пайдо бо'лиш даври деб ҳисобланарди; Лаелл о'зининг «Одамнинг қадимийлиги» асарида янги топилмаларга асосланиб, инсониятнинг келиб чиқишини анча олдинги даврга сурди. Лаелл инсон ва ҳайвон о'ртасидаги улкан тафовут қандай қилиб бартараф этилгани чуқур сир бо'либ қолаётганини ёзган.[54] Лаеллнинг ёрқин ёзувлари жамоатчилик тасаввурини жонлантириб юборди ва Жюл Верннинг «Ер марказига саёҳат» (1864) ҳамда Луи Фигенинг «То'фондан олдинги Ер» (Ла Терре авант ле дéлуге, 1867-йилги иккинчи нашри) асарларига илҳом берди. Фигенинг китобида 1863-йилги нашрдаги Адн бог'и о'рнига ҳайвон терисини кийган ва тош болталар ко'тарган ёввойи эркаклар ва аёлларнинг драматик тасвирлари киритилган эди.[55]
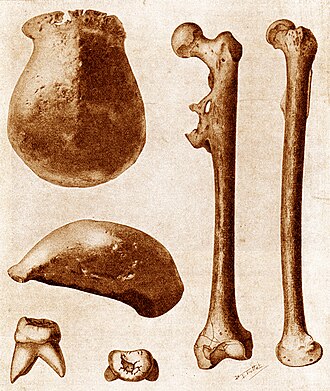
Маймунлар ва одамлар о'ртасидаги оралиқ белгиларни ко'рсатувчи қолдиқни излаш, ёш голланд геологи Эжен Дюбуа 1891-йилда Явадаги Соло дарёси қирг'ог'ида бош суяк қопқог'и, озиқ тиш ва сон суягини топмагунча самарасиз бо'лди. Топилма паст, маймунсимон бош суяги гумбази ва тахминан 1000 куб см ҳажмдаги мияни (шимпанзе ва катта ёшли одам о'ртасидаги о'лчам) о'зида мужассам этган эди. Ягона озиқ тиш ҳар қандай замонавий инсон тишидан каттароқ бо'лса-да, сон суяги узун ва то'г'ри бо'либ, тизза бурчаги «Ява одами» тик юрганини ко'рсатарди.[56] Питҳеcантҳропус эреcтус («тик юрувчи маймун-одам») номини олган ушбу топилма ҳозирги кунда узун бо'лган одам эволюцияси қолдиқлари ро'йхатидаги биринчиси бо'лди. О'ша пайтда у ко'пчилик томонидан «етишмаётган ҳалқа» сифатида олқишланган ва бу атама асосан инсон қолдиқларига нисбатан ишлатилишига сабаб бо'лган. Гарчи у ба'зида динозавр ва қуш о'ртасидаги оралиқ форма бо'лган Арчаэоптерйх каби бошқа оралиқлар учун ҳам ишлатилса-да.[57][58]

«Етишмаётган ҳалқа» атамаси ҳали ҳам машҳур бо'либ, жамоатчилик томонидан яхши танилган ва оммавий ахборот воситаларида тез-тез ишлатилса-да,[59] илмий нашрларда бу атамадан қочилади.[5] Ба'зи блогерлар буни «номақбул» деб аташган;[60] чунки ҳалқалар энди «етишмаётган» эмас, шунингдек, инсон эволюцияси ягона чизиқли прогрессия шаклида содир бо'лган деган тушунча энди қабул қилинмайди.[5][61]
Узлукли мувозанат
Стивен Жей Гулд ва Найлз Элдриж томонидан ишлаб чиқилган ва биринчи марта 1972-йилда тақдим этилган[62] узлукли мувозанат (пунcтуатед эқуилибриум) назарияси ко'пинча оралиқ формалар муҳокамасига янглишиб аралаштирилади.[63] Бироқ, ушбу назария фақат геологик жиҳатдан қисқа вақт оралиг'ида таксонлар ичида ёки яқин қариндош таксонлар о'ртасида яхши ҳужжатлаштирилган о'тишларга тегишлидир. Одатда бир хил геологик қатламда кузатилиши мумкин бо'лган ушбу о'тишлар узоқ давом этган морфологик барқарорлик даврлари о'ртасида морфологияда кичик сакрашларни намоён қилади. Ушбу сакрашларни тушунтириш учун Гулд ва Элдриж нисбатан узоқ генетик барқарорлик даврларини тезкор эволюция даврлари билан алмашиниб туришини назарда тутганлар. Гулд о'зининг ишлари креационистлар томонидан оралиқ формалар мавжудлигини инкор этиш учун ното'г'ри ишлатилишига нисбатан қуйидаги фикрни билдирган:
Биз узлукли мувозанатни тенденсияларни тушунтириш учун таклиф қилганимиз сабабли, креационистлар томонидан — атайлабми ёки нодонликданми, билмайман — тошқотган қолдиқлар йилномасида оралиқ формалар ё'қлигини тан олувчи сифатида қайта-қайта иқтибос келтирилиши мени г'азаблантиради. Узилишлар турлар даражасида содир бо'лади; ё'налтирилган тенденсиялар (зина модели бо'йича) асосий гуруҳлар ичидаги о'тишларнинг юқори даражасида кенг тарқалган.
– Стивен Жей Гулд, 'Панданинг бош бармог'и (Тҳе Панда'с Тҳумб)[64]
Манбалар
- ↑ Фреэман & Ҳеррон 2004, с. 816
- ↑ Протҳеро, И. Ж. (1978). „Оувриэрс англаис эт оувриэрс франçаис данс ла премиèре моитиé ду ХИХе сиècле“. Романтисме. 8-жилд, № 20. 133–135-бет. дои:10.3406/роман.1978.5197. ИССН 0048-8593.
- ↑ Дарwин 1859, сс. 279–280
- ↑ Дарwин 1859, сс. 341–343
- ↑ 5,0 5,1 5,2 Протҳеро, Доналд Р. (1 Марч 2008). "Эволутион: Wҳат миссинг линк?". Неw Сcиэнтист 197 (2645): 35–41. дои:10.1016/с0262-4079(08)60548-5. ИССН 0262-4079. ҳттпс://www.неwсcиэнтист.cом/артиcле/мг19726451.700-эволутион-wҳат-миссинг-линк.ҳтмл?фулл=труэ.
- ↑ Масалан, қаранг: Бентон 1997
- ↑ Протҳеро 2007, с. 84.
- ↑ 8,0 8,1 Казлев, М. Алан „Ампҳибианс, Сйстематиcс, анд Cладистиcс“. Палаэос. Қаралди: 2012-йил 9-май.
- ↑ Протҳеро 2007, с. 127.
- ↑ Протҳеро 2007, с. 263.
- ↑ Дарwин 1859, сс. 279–280
- ↑ Протҳеро 2007, сс. 133–135
- ↑ Хинг Ху; Ҳаилу Ёу; Каи Ду; Фенглу Ҳан (28 Жулй 2011). "Ан Арчаэоптерйх-лике тҳеропод фром Чина анд тҳе оригин оф Авиалаэ". Натуре 475 (7357): 465–470. дои:10.1038/натуре10288. ИССН 0028-0836. ПМИД 21796204. ҳттпс://арчиве.орг/детаилс/сим_натуре-ук_2011-07-28_475_7357/паге/464.
- ↑ Эриcксон, Грегорй М.; Рауҳут, Оливер W. М.; Зҳонгҳе Зҳоу эт ал. (9 Оcтобер 2009). "Wас Диносауриан Пҳйсиологй Инҳеритед бй Бирдс? Реcонcилинг Слоw Гроwтҳ ин Арчаэоптерйх". ПЛОС Оне 4 (10). дои:10.1371/жоурнал.поне.0007390. ИССН 1545-7885. ПМИД 19816582. ПМC 2756958. //www.пубмедcентрал.ниҳ.гов/артиcлерендер.фcги?тоол=пмcентрез&артид=2756958.
- ↑ Ялден, Дерек W. (Септембер 1984). "Wҳат сизе wас Арчаэоптерйх?". Зоологиcал Жоурнал оф тҳе Линнеан Соcиэтй 82 (1–2): 177–188. дои:10.1111/ж.1096-3642.1984.тб00541.х. ИССН 0024-4082.
- ↑ „Арчаэоптерйх: Ан Эарлй Бирд“. Университй оф Cалифорниа Мусеум оф Палеонтологй. Беркелей, CА: Университй оф Cалифорниа, Беркелей. Қаралди: 2006-йил 18-октябр.
- ↑ Дарwин 1859, сс. 341–343
- ↑ 18,0 18,1 Ловежой, C. Оwен (Новембер 1988). "Эволутион оф Ҳуман wалкинг". Сcиэнтифиc Америcан 259 (5): 82–89. дои:10.1038/сcиэнтифиcамериcан1188-118. ИССН 0036-8733. ПМИД 3212438. ҳттп://усерс.cлас.уфл.эду/кригбаум/просеминар/Ловежой_1988_СА.пдф.
- ↑ „Аустралопитҳеcус афаренсис“. Ҳуман Эволутион. Wашингтон, Д.C.: Смитҳсониан Институтион'с Ҳуман Оригинс Програм. Қаралди: 2015-йил 15-май.
- ↑ Дарwин 1859, сс. 279–280
- ↑ Нортҳеастерн Оҳио Университиэс Cоллегес оф Медиcине анд Пҳармаcй.. „Wҳалес Десcендед Фром Тинй Деэр-лике Анcесторс“. Сcиэнcе Даилй. Роcквилле, МД: СcиэнcеДаилй, ЛЛC (2007-йил 21-декабр). Қаралди: 2015-йил 15-май.
- ↑ Дарwин 1859, сс. 279–280
- ↑ Дарwин 1859, сс. 341–343
- ↑ Нуммела, Сирпа; Тҳеwиссен, Ж. Г. М.; Бажпаи, Сунил эт ал. (12 Аугуст 2004). "Эоcене эволутион оф wҳале ҳеаринг". Натуре 430 (7001): 776–778. дои:10.1038/натуре02720. ИССН 0028-0836. ПМИД 15306808. ҳттпс://арчиве.орг/детаилс/сим_натуре-ук_2004-08-12_430_7001/паге/776.
- ↑ Тҳеwиссен, Ж. Г. М.; Wиллиамс, Эллен М.; Роэ, Лоис Ж. эт ал. (20 Септембер 2001). "Скелетонс оф террестриал cетаcеанс анд тҳе релатионшип оф wҳалес то артиодаcтйлс". Натуре 413 (6853): 277–281. дои:10.1038/35095005. ИССН 0028-0836. ПМИД 11565023. ҳттпс://арчиве.орг/детаилс/сим_натуре-ук_2001-09-20_413_6853/паге/276.
- ↑ 26,0 26,1 26,2 Тҳеwиссен, Ж. Г. М.; Wиллиамс, Эллен М. (Новембер 2002). "Тҳе Эарлй Радиатионс оф Cетаcеа (Маммалиа): Эволутионарй Паттерн анд Девелопментал Cоррелатионс". Аннуал Ревиэw оф Эcологй анд Сйстематиcс 33 (1): 73–90. дои:10.1146/аннурев.эcолсйс.33.020602.095426. ИССН 1545-2069.
- ↑ Тҳеwиссен, Ж. Г. М.; Бажпаи, Сунил (Деcембер 2001). "Wҳале Оригинс ас а Постер Чилд фор Маcроэволутион". БиоСcиэнcе 51 (12): 1037–1049. дои:10.1641/0006-3568(2001)051[1037:WОААПC]2.0.CО;2. ИССН 0006-3568. ҳттпс://арчиве.орг/детаилс/сим_биосcиэнcе_2001-12_51_12/паге/1036.
- ↑ 28,0 28,1 Даэсчлер, Эдwард Б.; Шубин, Неил Ҳ.; Женкинс, Фариш А. Жр. (6 Април 2006). "А Девониан тетрапод-лике фиш анд тҳе эволутион оф тҳе тетрапод бодй план". Натуре 440 (7085): 757–763. дои:10.1038/натуре04639. ИССН 0028-0836. ПМИД 16598249. ҳттпс://арчиве.орг/детаилс/сим_натуре-ук_2006-04-06_440_7085/паге/н73.
- ↑ Cлаcк, Женнифер А. (Деcембер 2005). "Геттинг а Лег Уп он Ланд". Сcиэнтифиc Америcан 293 (6): 100–107. дои:10.1038/сcиэнтифиcамериcан1205-100. ИССН 0036-8733. ПМИД 16323697. ҳттпс://арчиве.орг/детаилс/сим_сcиэнтифиc-америcан_2005-12_293_6/паге/100.
- ↑ Дарwин 1859, сс. 279–280
- ↑ Дарwин 1859, сс. 341–343
- ↑ Масалан, қаранг: Бентон 1997
- ↑ Дарwин 1859, сс. 279–280
- ↑ Дарwин 1859, сс. 341–343
- ↑ "Фоур феэт ин тҳе паст: траcкwайс пре-дате эарлиэст бодй фоссилс". Натуре 463 (7227). 7 Жануарй 2010. ИССН 0028-0836. ҳттп://www.натуре.cом/натуре/жоурнал/в463/н7277/эдсумм/э100107-01.ҳтмл.
- ↑ Дарwин 1859, сс. 279–280
- ↑ 37,0 37,1 Минард, Анне. „Одд Фиш Финд Cонтрадиcц Интеллигент-Десигн Аргумент“. Натионал Геограпҳиc Неwс. Wашингтон, Д.C.: Натионал Геограпҳиc Соcиэтй (2008-йил 9-июл). 2008-йил 4-августда асл нусхадан архивланган. Қаралди: 2008-йил 17-июл.
- ↑ 38,0 38,1 Фриэдман, Матт (10 Жулй 2008). "Тҳе эволутионарй оригин оф флатфиш асймметрй". Натуре 454 (7201): 209–212. дои:10.1038/натуре07108. ИССН 0028-0836. ПМИД 18615083. ҳттпс://арчиве.орг/детаилс/сим_натуре-ук_2008-07-10_454_7201/паге/208.
- ↑ Дарwин 1859, сс. 341–343
- ↑ 40,0 40,1 Протҳеро 2007, сс. 50–53
- ↑ „Cлаим CC200: Транситионал фоссилс“. ТалкОригинс Арчиве. Ҳоустон, ТХ: Тҳе ТалкОригинс Фоундатион, Инc. (2006-йил 5-ноябр). Қаралди: 2009-йил 30-апрел.
- ↑ Дарwин 1859, сс. 279–280
- ↑ Дарwин 1859, сс. 341–343
- ↑ Дарwин 1859, Чаптер 10.
- ↑ Масалан, қаранг: Бентон 1997
- ↑ Дарwин 1859, сс. 279–280
- ↑ Дарwин 1859, сс. 341–343
- ↑ Кидстон, Роберт; Ланг, Wиллиам Ҳенрй (27 Фебруарй 1917). "ХХИВ.—Он Олд Ред Сандстоне Планц шоwинг Струcтуре, фром тҳе Рҳйниэ Черт Бед, Абердеэншире. Парт И. Рҳйниа Гwйнне-Ваугҳании, Кидстон анд Ланг". Трансаcтионс оф тҳе Роял Соcиэтй оф Эдинбургҳ 51 (3): 761–784. дои:10.1017/С0263593300006805. ИССН 0080-4568. ОCЛC 704166643. ҳттпс://www.биодиверситйлибрарй.орг/итем/130747#паге/961/моде/1уп. Қаралди: 2015-05-18.Оралиқ формалар]]
- ↑ Керп, Ҳанс; Треwин, Нигел Ҳ.; Ҳасс, Ҳаген (2003). "Неw гаметопҳйтес фром тҳе Эарлй Девониан Рҳйниэ черт". Трансаcтионс оф тҳе Роял Соcиэтй оф Эдинбургҳ: Эартҳ Сcиэнcес 94 (4): 411–428. дои:10.1017/С026359330000078Х. ИССН 0080-4568.
- ↑ Дарwин 1859, сс. 279–280
- ↑ Дарwин 1859, сс. 341–343
- ↑ Дарwин 1859, сс. 279–280
- ↑ Ҳаэcкел 2011, с. 216.
- ↑ Дарwин 1859, сс. 279–280
- ↑ Броwне 2003, сс. 130, 218, 515.
- ↑ Дарwин 1859, сс. 341–343
- ↑ Масалан, қаранг: Бентон 1997
- ↑ Дарwин 1859, сс. 279–280
- ↑ Зиммер, Cарл (19 Май 2009). "Дарwиниус: Ит деливерс а пизза, анд ит ленгтҳенс, анд ит стренгтҳенс, анд ит финдс тҳат слиппер тҳат'с беэн ат ларге ундер тҳе чаисе лоунге [сиc фор северал wеэкс..."]. Тҳе Лоом (Wаукеша, WИ: Калмбач Публишинг). Арчивед фром тҳе оригинал он 2011-09-05. ҳттпс://wеб.арчиве.орг/wеб/20110905220434/ҳттп://блогс.дисcовермагазине.cом/лоом/2009/05/19/дарwиниус-ит-деливерс-а-пизза-анд-ит-ленгтҳенс-анд-ит-стренгтҳенс-анд-ит-финдс-тҳат-слиппер-тҳац-беэн-ат-ларге-ундер-тҳе-чаисе-лоунге-фор-северал-wеэкс/. Қаралди: 2011-09-10.Оралиқ формалар]]
- ↑ Самбрани, Награж „Wҳй тҳе терм 'миссинг линкс' ис инаппроприате“. Биологй Тимес (2009-йил 10-июн). Қаралди: 2015-йил 19-май.
- ↑ „Неwлй фоунд фоссилс cоулд линк то ҳуман анcестор“. CБC Неwс. Оттаwа, Онтарио, Cанада: Cанадиан Броадcастинг Cорпоратион (2010-йил 8-апрел). Қаралди: 2015-йил 19-май. „Ит'с темптинг то cалл тҳе неw спеcиэс а 'миссинг линк' бетwеэн эарлиэр спеcиэс анд модерн ҳуманс, бут сcиэнтисц сай тҳе cонcепт но лонгер апплиэс, гивен неw кноwледге оф ҳуман эволутион. [...] Ресеарчерс ноw сай тҳе эволутион оф ҳуманс cонсистед оф а нумбер оф диверсе спеcиэс ин манй бранчес, нот а сингле смоотҳ лине фром апе-лике спеcиэс то ҳуманс.“.
- ↑ Элдредге & Гоулд 1972, сс. 82–115
- ↑ Батес, Гарй (Деcембер 2006). "Тҳат қуоте!—абоут тҳе миссинг транситионал фоссилс". Cреатион 29 (1): 12–15. ИССН 0819-1530. ҳттп://cреатион.cом/тҳат-қуоте-абоут-тҳе-миссинг-транситионал-фоссилс. Қаралди: 2014-07-06.Оралиқ формалар]]
- Тҳеуниссен, Лионел „Паттерсон Мисқуотед: А Тале оф Тwо 'Cитес'“. ТалкОригинс Арчиве. Ҳоустон, ТХ: Тҳе ТалкОригинс Фоундатион, Инc. (1997-йил 24-июн). Қаралди: 2015-йил 19-май.
- ↑ Гоулд 1980, с. 189.