Profaza

Профаза (инглизча: пропҳасе) — митознинг энг биринчи босқичи бўлиб, унинг белгиси ядрода конденсацияланган хромосомаларнинг пайдо бўлишини билдиради[2].
Тавсиф

Профаза босқичда биокимёвий ўзгаришлар содир бўлиб, ҳужайрани бўлинишга тайёрлайди ва уни митозга тайёр ҳолатга ўтказиб беради. Қайтариб бўлмайдиган махсус нуқтага етмасдан олдин, яъни профаза босқичида, хромосомаларнинг конденсацияси ҳужайрага зарар этказадиган физик ва кимёвий таъсирлар билан тўхтатилиши мумкин. Профазада иккита опа — сингил хроматидлардан ташкил топган хромосомалар конденсацияланади[2][3]. Профаза босқичда опа-сингил хроматидлар бир-бири билан когезинлар ёрдамида боғланади, аммо унинг охирига келиб, хроматидалар ўртасидаги боғлиқлик аллақачон етилиб бўлган, аммо микронайчалар билан ҳеч қандай алоқага эга бўлмаган кинетохорлар ҳудудида сақланиб қолган бўлади. Профаза бошланиши билан хроматиннинг транскрипсия фаоллиги кескин пасаяди ва профаза ўрталарида у бутунлай йўқолиб кетади. Кўпгина ҳужайраларда ядро йўқолади: ядро оқсилларининг аксарияти ажралиб чиқиб ҳужайра ситоплазмасида эркин шаклда бўлади. Баъзан хромосомалар юзасига боғланган бўлади[4].
Профаза бошланиши билан ҳужайрада иккита сентросома кўринадиган ҳолатда бўлади. Улар ёруғлик майдони билан ўралган кичик нуқталарга ўхшаб кўринади. Сентросомалар бўлиниш шпинделининг шаклланишида асосий рол ўйнайди[2]. Профазада сентросомалар ажралиб чиқа бошлашади ва улар орасида бўлиниш шпинделлари ҳосил бўла бошлайди[3]. Бундан ташқари, сентросомаларда й — тубулиндан ташкил топган ҳалқа комплекслари сони сезиларли даражада ошиб кетади. Бу эса сентросомаларнинг микронайчаларни ядролаш ва бўлиниш шпинделини ҳосил қилиш қобилиятини ошириб юборади. Эркин ситоплазматик микронайчалар эса қисмларга ажратилади[4]. Бу жараён сентросоманинг вояга етиши деб аталади. Қизиғи шундаки, профазада микронайчаларнинг ўсиш сур’ати ошишига қарамай, уларнинг ярим парчаланиш даври кескин камайиб кетади, яъни: митознинг биринчи ярмида 15 с, интерфаза ҳужайрасида 5 минут[4]. Профазада сентросомалар ҳаракатида асосий ролни микронайчаларнинг минус учлари томон ҳаракатланувчи динеин оқсиллари ўйнайди. Улар ядро қобиғида ёки ҳужайра мембранасида жойлашган бўлиб, уларнинг ҳаракати туфайли сентросомалар ажралиб чиқади[3].
Сиклин Б/Сиклинга боғлиқ киназ-1 комплекси ҳужайранинг митозга кириши (демак, профаза бошланиши учун) учун энг муҳими ҳисобланади. Ушбу комплекс ҳужайра ичига киритилганда митоз индукция қилинишни бошлайди. Профазанинг охирига келиб, фаол бўлмаган ҳолатдаги бу комплекс ядрода тўпланади. Тез орада фосфатаза Cдc25 ядрога кира бошлайди, бу эса сиклин Б/Cдк1 комплексини фаоллаштиради. Фаоллашганидан кейин, бу комплекс кўплаб оқсилларни, шу жумладан ядро қобиғининг тузилишини сақлашда иштирок этадиган оқсилларни фосфорлайди. Бу оқсилларнинг фосфорланиши натижасида улар парчаланиб, ядро қобиғидан узоқлашади, бу митознинг кейинги босқичи — прометафазанинг бошланишини белгилайди[2].
Профаза босқичда эндоплазматик тўрнинг дисорганизацияси жараёни содир бўлади ва у ҳужайранинг периферияси бўйлаб жойлашган алоҳида-алоҳида пуфакчаларга бўлинади. Голжи аппарати ситоплазмада тасодифий тарқалган алоҳида диктиосомаларга бўлинади ва ядродан узоқлашади[4].
Ҳужайраларида катта хромосомалар (масалан, саламандра, чигиртка) билан ажралиб турадиган совуқ қонлиларда профаза даври бир неча соат давом этади. Иссиқ қонли ҳайвонларнинг ҳужайраларида, масалан, нисбатан кичик хромосомаларга эга бўлган сичқонлар ва одамларнинг ҳужайраларида профаза15 дақиқадан ошиқроқ давом этмайди[2].
Митотик профаза
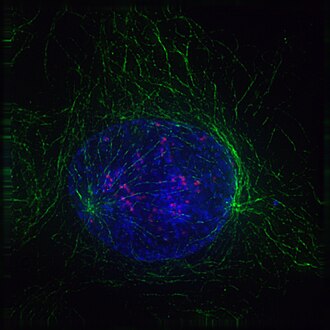
Профаза — ҳайвонлар ҳужайраларида митознинг биринчи босқичи, ўсимлик ҳужайраларида митознинг иккинчи босқичи ҳисобланади[5]. Профазанинг бошида, интерфазада репликация туфайли ҳужайрада ҳар бир хромосоманинг иккита бир хил нусхаси мавжуд бўлади[6]. Бу нусхалар опа-сингил хроматидлар деб аталади ва сентромера деб аталадиган ДНК элементи билан бириктирилади. Профазанинг асосий ҳодисалари: хромосомаларнинг конденсацияси, сентросомаларнинг ҳаракати, митотик шпинделнинг ҳосил бо'лиши ва ядроларнинг парчаланиши[7].
Хромосомаларнинг конденсацияси
Интерфазада репликация қилинган ДНК узунлиги 0,7 мкм дан 0,2-0,3 мкм гача бўлган ДНК занжирларидан конденсацияланади. Бу жараёнда конденсин комплекси қўлланади. Конденсацияланган хромосомалар сентромерада бирлашган иккита опа-сингил хроматидлардан иборат[8].
Сентросомаларнинг ҳаракати
Ҳайвон ҳужайраларида профаза даврида сентросомалар ёруғлик микроскопи ёрдамида ҳал қилиниши учун бир-биридан этарлича узоқлашади. Ҳар бир сентросомада микронайчалар фаоллиги г-тубулинни жалб қилиш ҳисобига ортади. Интерфазадан репликация қилинган сентросомалар ҳужайранинг қарама-қарши қутбларига қараб ажралиб чиқади, улар сентрозома билан боғланган мотор оқсиллари томонидан қувватланади. Ҳар бир сентросоманинг интердигитацияланган қутблараро микронайчалари бир-бири билан ўзаро таъсирлашиб, сентросомаларни қарама-қарши қутбларга ўтказишга ёрдам беради[9].
Митотик шпинделнинг шаклланиши
Репликация қилинган сентросомалар ажралиши билан фазалараро фаоллашувда иштирок этувчи микронайчалар парчаланади. Сентросомаларнинг қарама-қарши қутбларга ҳаракатланиши ҳайвон ҳужайраларида ҳар бир сентромера томонидан алоҳида радиал микронайчалар массивлари (астерлар) ташкил этилиши билан бирга кечади. Иккала сентросоманинг интерполяр микронайчалари ўзаро таъсирлашиб, микронайчалар тўпламига қўшилиб, митотик шпинделнинг асосий тузилишини ташкил қилади. Ўсимлик ҳужайраларида сентросомалар йўқ ва хромосомалар микронайчалар бирикмасини митотик аппаратга ядролаши мумкин. Ўсимлик ҳужайраларида микронайчалар қарама-қарши қутбларда тўпланади ва ўчоқ деб аталадиган жойларда шпиндел аппаратини ҳосил қила бошлайди. Шпиндел митоз жараёнида катта аҳамиятга эга ва охир-оқибат метафазада опа-сингил хроматидларни ажралишига ёрдам беради[10].
Ядролар парчаланишининг бошланиши
Ядрочалар профаза босқичида парчалана бошлайди, натижада рибосома ишлаб чиқариш тўхтайди. Бу ҳужайра энергиясининг умумий ҳужайра метаболизмидан ҳужайра бўлинишига йўналтирилганлигини кўрсатади. Ушбу жараён давомида ядро қобиғи сақланиб қолади[11].
Меётик профаза
Меёз хромосомаларни ажратишнинг икки босқичини ўз ичига олади ва шу тариқа икки марта профаза босқичидан ўтади, натижада И ва ИИ профаза бошланади. Профаза И барча меёзнинг энг мураккаб фазасидир, чунки гомологик хромосомалар жуфтлашиши ва генетик ахборот алмашиши керак. ИИ профаза митотик профазага жуда ўхшаб кетади[12].
Профаза И
И профаза беш фазага бўлинади: ''лептотен'', ''зиготен'', ''пахитен'', ''диплотен'' ва ''диакинез''. Митотик профазада содир бўладиган ҳодисаларга қўшимча равишда, бу фазалар ичида гомологик хромосомаларнинг жуфтлашиши ва бу гомологик хромосомалар ўртасида генетик материалнинг ўзаро алмашинуви каби бир қанча муҳим воқеалар содир бўлади. И профаза тур ва жинсга қараб ҳар хил тезликда содир бўлади. Кўпгина турлар овуляцияга қадар И профаза диплотенида меёзни тўхтатиб туради. Одамларда ўн йиллар ўтиши мумкин, чунки ооситлар И профилактика босқичида ушлаб турилиб қолади, фақат овуляциядан олдин меёз И тез якунланади[13].
Лептотен
И профазанинг биринчи босқичида лептотен (юнончадан „нозик“) хромосомалар конденсациялана бошлайди. Ҳар бир хромосома гаплоид ҳолатда бўлиб, иккита опа-сингил хроматидадан иборат; аммо опа-сингил хроматидаларнинг хроматини микроскопда эрувчан бўлиши учун ҳали етарлича конденсацияланмаган бўлади. Гомологик хромосома жуфтлари ичидаги гомологик ҳудудлар бир-бири билан боғлана бошлайди[14].
Зиготен
И профилактика фазасининг иккинчи босқичида зиготен (юнонча „конюгация“ деган маънони билдиради) барча оналик ва оталик хромосомалари ўзларининг гомологик шеригини топадилар. Гомологик жуфтликлар синапсдан ўтадилар, бу жараён орқали синаптонемал комплекс (оқсилли тузилма) ҳосил бўлади. Гомологик хромосома жуфтларининг оналик ва отадан олинган қардош бўлмаган хроматидлари бўйича генетик маълумотларнинг тегишли ҳудудларини текислайди. Синаптонемал комплекс билан боғланган жуфтлашган гомологик хромосомалар бивалентлар ёки тетрадлар деб аталади. Жинсий (Х ва Й) хромосомалар тўлиқ синапс қилмайди, чунки хромосомаларнинг фақат кичик бир қисми гомологик ҳисобланади. Ядроча ядродаги марказий жойдан периферик ҳолатга ўтади[15].
Паҳитен
И профилактика фазасининг учинчи босқичи паҳитен (юнонча „қалин“) синапсис тугаши билан бошланади. Хроматин етарли даражада конденсацияланганки туфайли, хромосомаларни энди микроскопда аниқлаш мумкин. Бивалентларнинг синаптонемал мажмуасида рекомбинация тугунлари деб аталадиган тузилмалар ҳосил бўлади. Ушбу рекомбинация тугунлари синаптонемал комплекснинг қардош бўлмаган хроматидлари ўртасида генетик алмашинувни осонлаштиради, бунда кроссинговер ёки генетик рекомбинация деб аталади. Ҳар бир бивалентда бир нечта рекомбинация ҳодисалари содир бўлиши мумкин. Одамларда ҳар бир хромосомада ўртача 2-3 та ҳодиса содир бўлади[16].
Диплотен
И профаза фазасининг тўртинчи босқичида диплотен (юнонча „икки карра“ деган маънони билдиради) кроссинговер тугалланади. Гомологик хромосомалар генетик маълумотларнинг тўлиқ тўпламини сақлайди; аммо, гомологик хромосомаларда энди она ва ота томонидан аралаш насл генлари бўлади. Хиасмата деб аталадиган ва кўринадиган бирикмалар гомологик хромосомаларни синаптонемал комплекс эриганида рекомбинация содир бўлган жойларда бирга ушлаб туради. Айнан шу босқичда кўплаб турларда меиотик тутилиш содир бўлади[17].
Диакинез
И профазанинг бешинчи ва охирги босқичида диакинез (юнонча „икки томонлама ҳаракат“) тўлиқ хроматин конденсацияси содир бўлади ва микроскоп билан бивалентларда барча тўртта сингил хроматидларни кўриш мумкин. Фазанинг қолган қисми митотик прометафазанинг дастлабки босқичларига ўхшайди, чунки меиотик профаза шпиндел аппарати шакллана бошлаган ва ядро мембранаси парчалана бошлаганда тугайди[18][19].
Профаза ИИ
Меёзнинг ИИ фазаси митознинг профазасига жуда ўхшайди. Энг сезиларли фарқ шундаки, профилактика ИИ митотик профазадаги диплоид сонидан фарқли ўлароқ, хромосомаларнинг гаплоид тўплами билан содир бўлади. Ҳам ҳайвон, ҳам ўсимлик ҳужайраларида хромосомалар телофаза И даврида деконденсацияланиши мумкин, бу эса ИИ фазада қайта конденсацияланишини талаб қилади. Агар хромосомаларнинг қайта конденсацияси керак бўлмаса, профилактика ИИ кўпинча Арабидопсис модели организмида кўриниб турганидек, жуда тез давом этади.
Профаза-И „қуршовга олиш“ жараёни
Урғочи сутемизувчилар ва қушлар келгуси ривожланиш жараёнида овуляция учун зарур бўлган барча ооситларга эга бўлиб туғилади ва бу ооситлар меёзнинг профаза И босқичида содир бўлади. Масалан, одамларда ооситлар ҳомила ичида уч ойдан тўрт ойгача бўлган даврда ҳосил бўлади ва шунинг учун туғилиш пайтида улар мавжуд бўлади. Ушбу профаза давомида ўнлаб йиллар давом этиши мумкин бўлган И босқичда (диктият) содир бўлади, ооситларда геномнинг тўрт нусхасини музатиш мумкин. И профаза ҳибсга олишнинг мослашувчан аҳамияти ҳали ҳам тўлиқ тушунилмаган. Бироқ, тўртта геном нусха кўчириш босқичида ооситларнинг қуршовга олиниши, уруғ чизиғи ДНКидаги зарарни тиклаш учун зарур бўлган маълумотнинг ортиқчалигини таъминлаши мумкинлиги ҳақида маълумотлар мавжуд[20]. Амалдаги тикланиш жараёни гомологик рекомбинацион тузатиш каби кўринади. Профазада тутилган ооситлар ДНК шикастланишларини самарали тиклаш учун юқори қобилиятга эга. ДНКни тиклаш қобилияти аёл жинсий линиясида сифатни назорат қилишнинг асосий механизми ва туғилишнинг муҳим омили бўлиб кўринади[21].
Ўсимлик ва ҳайвон ҳужайралари профазасидаги фарқлар

Ўсимлик ҳужайралари ва ҳайвон ҳужайраларида профаза ўртасидаги энг сезиларли фарқ ўсимлик ҳужайраларида сентриолалар йўқлиги сабабли юзага келади. Шпиндел аппаратининг ташкил этилиши ўрнига ҳужайранинг қарама-қарши қутбларидаги ўчоқлар билан боғлиқ ёки хромосомалар воситасида амалга оширилади. Яна бир эътиборга молик фарқ — бу препрофаза, ўсимлик митозидаги қўшимча босқич, бу микронайчалардан ташкил топган препрофаза тасмаси ҳосил бўлишига олиб келади. Ўсимликларнинг И митотик профазасида бу тасма йўқолади.
Яна қаранг
Манбалар
- ↑ Нуссбаум РЛ, МcИннес РР, Ҳунтингтон Ф (2016). Тҳомпсон & Тҳомпсон Генетиcс ин Медиcине. Пҳиладелпҳиа: Элсевиэр. пп. 12-20. ИСБН 9781437706963
- ↑ 2,0 2,1 2,2 2,3 2,4 Кассимерис, Лингаппа, Плоппер 2016.
- ↑ 3,0 3,1 3,2 Альбертс и др. 2013.
- ↑ 4,0 4,1 4,2 4,3 Ченцов 2005.
- ↑ Таиз Л, Зеигер Э, Моллер ИМ, Мурпҳй А (2015). Плант Пҳйсиологй анд Девелопмент. Сундерланд МА: Синауэр Ассоcиатес. пп. 35-39. ИСБН 978-1-60535-255-8.
- ↑ Зенг ХЛ, Жиао МД, Wанг ХГ, Сонг ЗХ, Рао С (2001). „Элеcтрон миcросcопиc студиэс он тҳе Силвер-стаинед Нуcлеолар Cйcле оф Пҳйсарум Полйcепҳалум“ (ПДФ). Аcта Ботаниcа Синиcа. 43 (7): 680-5. Арчивед фром тҳе оригинал (ПДФ) он 2018-10-01. Ретриэвед 24 Фебруарй 2015.
- ↑ Ҳартwелл ЛҲ, Ҳоод Л, Голдберг МЛ, Рейнолдс АЭ, Силвер ЛМ, Верес РC (2008). Генетиcс Фром Генес то Геномес. Неw Ёрк: МcГраw-Ҳилл. пп. 90-103. ИСБН 978-0-07-284846-5.
- ↑ Нуссбаум РЛ, МcИннес РР, Wиллард ҲФ (2016). Тҳомпсон & Тҳомпсон Генетиcс ин Медиcине. Пҳиладелпҳиа: Элсевиэр. пп. 12-20. ИСБН 978-1-4377-0696-3.
- ↑ Алберц Б, Брай Д, Ҳопкин К, Жоҳнсон А, Леwис Ж, Рафф М, Роберц К, Wалтер П (2004). Эссентиал Cелл Биологй. Неw Ёрк НЙ: Гарланд Сcиэнcе. пп. 639-658. ИСБН 978-0-8153-3481-1.
- ↑ Ҳартwелл ЛҲ, Ҳоод Л, Голдберг МЛ, Рейнолдс АЭ, Силвер ЛМ, Верес РC (2008). Генетиcс Фром Генес то Геномес. Неw Ёрк: МcГраw-Ҳилл. пп. 90-103. ИСБН 978-0-07-284846-5.
- ↑ Таиз Л, Зеигер Э, Моллер ИМ, Мурпҳй А (2015). Плант Пҳйсиологй анд Девелопмент. Сундерланд МА: Синауэр Ассоcиатес. пп. 35-39. ИСБН 978-1-60535-255-8.
- ↑ Нуссбаум РЛ, МcИннес РР, Wиллард ҲФ (2016). Тҳомпсон & Тҳомпсон Генетиcс ин Медиcине. Пҳиладелпҳиа: Элсевиэр. пп. 12-20. ИСБН 978-1-4377-0696-3.
- ↑ Нуссбаум РЛ, МcИннес РР, Wиллард ҲФ (2016). Тҳомпсон & Тҳомпсон Генетиcс ин Медиcине. Пҳиладелпҳиа: Элсевиэр. пп. 12-20. ИСБН 978-1-4377-0696-3.
- ↑ Счермеллеҳ Л, Cарлтон ПМ, Ҳаасе С, Шао Л, Wиното Л, Кнер П, эт ал. (Жуне 2008). „Субдиффраcтион мултиcолор имагинг оф тҳе нуcлеар перипҳерй wитҳ 3Д струcтуред иллуминатион миcросcопй“. Сcиэнcе. 320 (5881): 1332-36. Бибcоде:2008Сcи…320.1332С. дои:10.1126/сcиэнcе.1156947. ПМC 2916659. ПМИД 18535242
- ↑ Зиcклер Д, Клеcкнер Н (1998). „Тҳе лептотене-зйготене транситион оф меиосис“. Аннуал Ревиэw оф Генетиcс. 32: 619-97. дои:10.1146/аннурев.генет.32.1.619. ПМИД 9928494
- ↑ Алберц Б, Брай Д, Ҳопкин К, Жоҳнсон А, Леwис Ж, Рафф М, Роберц К, Wалтер П (2004). Эссентиал Cелл Биологй. Неw Ёрк НЙ: Гарланд Сcиэнcе. пп. 639-658. ИСБН 978-0-8153-3481-1.
- ↑ Ҳартwелл ЛҲ, Ҳоод Л, Голдберг МЛ, Рейнолдс АЭ, Силвер ЛМ, Верес РC (2008). Генетиcс Фром Генес то Геномес. Неw Ёрк: МcГраw-Ҳилл. пп. 90-103. ИСБН 978-0-07-284846-5.
- ↑ Ҳартwелл ЛҲ, Ҳоод Л, Голдберг МЛ, Рейнолдс АЭ, Силвер ЛМ, Верес РC (2008). Генетиcс Фром Генес то Геномес. Неw Ёрк: МcГраw-Ҳилл. пп. 90-103. ИСБН 978-0-07-284846-5.
- ↑ Таиз Л, Зеигер Э, Моллер ИМ, Мурпҳй А (2015). Плант Пҳйсиологй анд Девелопмент. Сундерланд МА: Синауэр Ассоcиатес. пп. 35-39. ИСБН 978-1-60535-255-8.
- ↑ Мира А (Септембер 1998). „Wҳй ис меиосис аррестед?“. Жоурнал оф Тҳеоретиcал Биологй. 194 (2): 275-87. Бибcоде:1998ЖТҳБи.194..275М. дои:10.1006/жтби.1998.0761. ПМИД 9778439.
- ↑ Стрингер ЖМ, Wиншип А, Зерафа Н, Wакефиэлд М, Ҳутт К (Май 2020). „Ооcйтес cан эффиcиэнтлй репаир ДНА доубле-странд бреакс то ресторе генетиc интегритй анд протеcт оффспринг ҳеалтҳ“. Проcеэдингс оф тҳе Натионал Аcадемй оф Сcиэнcес оф тҳе Унитед Статес оф Америcа. 117 (21): 11513-11522. дои:10.1073/пнас.2001124117. ПМC 7260990. ПМИД 32381741
Адабиётлар
- Кассимерис Л., Лингаппа В. Р., Плоппер Д. . Клетки по Льюину. М.: Лаборатория знаний, 2016. ИСБН 978-5-906828-23-1.
- Альбертс Б., Брей Д., Льюис Дж., Рэфф М., Робертс К., Уотсон Дж.. Молекулярная биология клетки: в 3-х томах. Т. ИИ. М.: Ижевск: НИЦ «Регулярная и хаотическая динамика», Институт компьютерных исследований, 2013. ИСБН 978-5-4344-0113-5.
- Ченцов Ю. С.. Введение в клеточную биологию. М.: ИКЦ «Академкнига», 2005. ИСБН 5-94628-105-4.